

서 언
재료 및 방법
실험 재료, 환경 및 조사 개체
실험 처리 및 조사 시점
생육 조사
광합성 색소 분석
엽록소 형광 측정
다분광 영상 분석
통계 분석
결과 및 고찰
건조 스트레스와 회복관수에 따른 지황 묘의 엽온 및 지상부 생육
건조 스트레스와 회복관수에 따른 지황 묘의 광합성 색소 특성
건조 스트레스와 회복관수에 따른 지황 묘의 배지함수량, 지하부 생육 특성 및 묘소질
건조 스트레스와 회복관수에 따른 지황 묘의 엽록소 형광 반응
건조 스트레스와 회복관수에 따른 지황 묘의 다분광 반사율과 식생지수 변화
건조 4일차(6/24)의 지황 묘 다분광 영상과 생육 지표 간 상관분석
종합 고찰 및 한계점
결 론
서 언
지황 [Rehmannia glutinosa(Gaertn.) Libosch. ex Steud.]은 현삼과(Scrophulariaceae)에 속하는 다년생 초본식물로서 지하부에 형성되는 괴근이 주요 약용 부위로 이용된다(Jeong et al. 2004). 주요 생리활성 성분으로는 catalpol, GABA 및 iridoid 배당체류 등이 보고되어 있으며, 이들은 혈당 조절, 신경계 안정 및 항염 활성 등과 관련된 것으로 알려져 있다(Zhang et al. 2008; Jiang et al. 2015). 이에 따라 지황은 한방 의약품과 건강기능식품의 소재로 널리 활용되고 있으며, 국내에서도 재배와 이용에 대한 관심이 지속되고 있다(Lee et al. 2017). 따라서 지황은 수요 증가에 대응하기 위한 안정적인 생산 기반 구축이 요구되는 중요한 약용작물이다.
지황은 종자 파종 또는 종근 이식을 통해 재배되지만, 파종 및 이식 후 고온·건조 조건에서는 출아가 불균일해지고 과습 조건에서는 부패가 발생할 수 있어 안정적인 재배가 어렵다(Lee et al. 2019). 노지 재배에서는 관행적으로 출아율이 80% 이하일 경우 보식 작업을 실시하지만, 결주 발생 이후 이루어지는 보식은 개체 간 생육 단계의 불균일을 초래하여 생산량 감소로 이어질 수 있다(Lee et al. 2024). 이러한 한계를 극복하기 위한 방안으로 균일한 묘를 생산할 수 있는 공정육묘 기술이 제안되었으며, 출아 불균일을 개선하고 보식용 묘의 생산 기간을 단축하기 위한 지황 공정육묘 체계 확립 연구가 수행되어 왔다(Lee et al. 2019; Lee et al. 2024).
공정육묘는 균일한 묘를 대량으로 생산함으로써 정식 후 활착률과 생육 균일성을 높이고 노동력을 절감할 수 있어 채소류를 중심으로 산업적 규모로 발전해 왔다(Park et al. 2011). 그러나 지황은 괴근을 형성하는 작물로서 수분 조건에 민감하게 반응하며, 플러그 육묘에서는 소용량의 개별 셀에 종근을 파종하기 때문에 배지 수분이 빠르게 변동하여 건조 스트레스에 노출되기 쉽다. 건조 스트레스는 기공 폐쇄에 따른 증산 억제, 광합성 저하 및 세포 팽압 감소 등의 복합적인 생리 장해를 유발하여 묘의 생육과 품질을 저하시킬 수 있다(Chaves et al. 2003; Farooq et al. 2009). 따라서 지황 플러그묘의 안정적인 생산을 위해서는 건조 스트레스에 따른 생리적 변화를 신속하게 파악하고 묘의 상태를 객관적으로 평가할 수 있는 진단 기술이 필요하다.
최근 채소류 공정육묘 분야에서는 묘의 생육과 스트레스 상태를 신속하고 객관적으로 평가하기 위해 다분광 영상과 같은 비파괴적 진단 기술의 활용이 확대되고 있다(Jang et al. 2024; Kang et al. 2025). 다분광 영상 분석은 식물체의 광합성 색소, 조직 수분 상태 및 세포 내부 구조와 관련된 분광 반사 특성을 이용하여 생육 상태와 스트레스를 비파괴적으로 평가하는 기술이다(Peñuelas and Filella 1998; Li et al. 2014; Mahlein 2016). 잎의 분광 반사 특성은 파장대에 따라 서로 다른 물리·생화학적 요인의 영향을 받는다. 가시광선 영역(400–700nm)은 주로 엽록소와 카로티노이드에 의한 광 흡수, 근적외선(near-infrared, NIR) 영역(700–1,100nm)은 잎 내부의 세포 및 세포 간극 구조에 의한 광 산란, 단파적외선 영역(1,100–2,500nm)은 조직의 수분과 화학적 조성에 의해 지배적으로 영향을 받는다(Carter and Knapp 2001; Jacquemoud and Ustin 2001). 건조 스트레스에 따른 잎의 수분 상태, 광합성 색소 및 세포 구조의 변화는 이러한 분광 반사 특성에 반영되므로, 다분광 영상은 식물체에 가시적인 피해가 나타나기 전 스트레스를 탐지할 수 있는 수단으로 활용될 수 있다.
식생지수는 서로 다른 파장대의 반사율을 조합하여 식물의 생육 및 생리 상태를 정량화한 지표이다. NDVI(Normalized difference vegetation index)와 같은 식생지수를 활용하면 식물의 활력, 엽록소 함량 및 조직 수분 상태와 관련된 정보를 신속하게 추정할 수 있으며(Gitelson et al. 1996; Sishodia et al. 2020), 식물 스트레스의 조기 탐지와 생리 상태 평가에 대한 유효성도 보고되어 왔다(Ceccato et al. 2001; Ihuoma and Madramootoo 2017). 특히 건조 스트레스는 잎의 수분 상태, 색소 조성, 세포 구조 및 노화 반응에 복합적인 변화를 유도하므로, 서로 다른 생리적 의미를 갖는 여러 식생지수를 함께 분석할 필요가 있다. NDVI는 Red와 NIR 영역의 반사율 차이를 바탕으로 식생 활력과 수관 발달을 평가하는 대표적인 지수이며(Rouse et al. 1974), GNDVI(Green normalized difference vegetation index)는 Green 영역을 이용하여 엽록소 상태와 스트레스에 따른 색소 변화에 민감하게 반응한다(Gitelson et al. 1996). NGRDI(Normalized green-red difference index)는 Green과 Red 영역만으로 산출되므로 NIR 영역의 구조적 반응과 구분하여 엽색 및 가시광 반사 특성의 변화를 평가하는 데 활용될 수 있다(Hunt et al. 2005). NDRE(Normalized difference red edge index)는 red-edge 영역을 포함하여 초기 엽록소 상태 변화에 민감하게 반응하며(Barnes et al. 2000), PSRI(Plant senescence reflectance index)는 엽록소 감소와 카로티노이드 비율 변화에 따른 노화 및 색소 손상 반응을 평가하는 데 이용된다(Merzlyak et al. 1999). 이에 본 연구에서는 건조 스트레스에 따른 지황 플러그묘의 엽색, 엽록소 상태, 잎 내부 구조 및 회복기 색소 손상 반응을 다각적으로 평가하기 위해 이러한 식생지수를 선정하였다.
한편, 잎의 분광 반사 특성은 작물별 잎 두께, 광합성 색소 조성 및 표면 구조 등의 생리·형태적 특성에 따라 달라질 수 있다(Knipling 1970; Carter and Knapp 2001). 따라서 채소류에서 유효성이 확인된 분광 지표가 약용작물에도 동일하게 적용된다고 단정하기 어려우며, 작물별 분광 반응의 생리적 기반을 확인하기 위해서는 파괴적 생육·생리 조사와 비파괴적 영상 분석을 병행할 필요가 있다. 그럼에도 불구하고 약용작물의 공정육묘 과정에서 다분광 영상을 활용하여 건조 스트레스 반응과 묘소질을 평가한 연구는 매우 제한적이다. 따라서 본 연구에서는 건조 스트레스와 재관수에 따른 지황 플러그묘의 생육 및 생리적 변화와 다분광 반사율 및 식생지수의 변화를 분석하고, 이들 지표 간의 관계를 구명하여 건조 스트레스의 조기 탐지와 비파괴적 묘소질 평가를 위한 기초 자료를 제공하고자 하였다.
재료 및 방법
실험 재료, 환경 및 조사 개체
본 실험에 사용된 지황 ‘토강’의 플러그묘는 국립원예특작과학원 인삼특작부에서 개발한 혼합 배지(원예용 상토 : 버미큘라이트 = 5 : 5)로 충진된 128구 플러그 트레이(Bumnong Co. Ltd., Jeongeup, Korea)에 종근을 이용하여 2025년 6월 9일 식재하였으며, 육묘 기간 동안 2일 간격으로 수돗물을 관수하였다. 9일간 육묘된 묘를 2025년 6월 18일에 수령하여 경상국립대학교 밀폐형 식물생산시스템에서 2일간 순화한 후 실험에 사용하였다. 밀폐형 식물생산시스템 내부 환경은 온도 32/29°C(명기/암기), 광주기 10/14시간(명기/암기), 광도 300µmol·m-2·s-1, LED 광원(R:G:B = 7:1:2)으로 유지하였으며, 수돗물로 관수하였다. 주야간 온도 조건(32/29°C)은 지황 육묘 적정 온도 구명을 위한 예비 실험에서 29/26, 32/29 및 35/32°C 조건을 비교한 결과 초기 생육에 가장 적합한 것으로 확인되어 설정하였다. 이는 지황의 출아율이 30–35°C에서 높게 유지된다는 보고(Lee et al. 2019) 및 시설 내 일평균 30–34°C에서 출아와 묘소질이 양호하였다는 결과(Park et al. 2025)와도 부합한 환경 조건이다.
본 실험에는 처리구당 128구 플러그 트레이 3개를 사용하여 처리구당 총 384개체를 배치하였다. 처리 전 초기 조사는 2025년 6월 20일에 전체 실험 개체 중 무작위로 선발한 12개체를 대상으로 수행하였다(n = 12). 처리 적용 후인 2025년 6월 23일, 24일 및 26일에는 각 조사 시점에서 처리구당 3개의 트레이로부터 트레이당 4개체씩, 총 12개체를 균등하게 무작위로 선발하여 조사하였다(n = 12). 가장자리 효과를 배제하기 위해 트레이 외곽 개체는 제외하였으며, 결주 및 병징·손상이 있는 비정상 개체는 처리 이외의 요인에 의한 변이를 줄이기 위해 조사 대상에서 제외하였다. 광합성 색소 및 엽록소 형광 분석은 각 조사 시점에서 처리구당 6개체를 대상으로 수행하였다(n = 6).
실험 처리 및 조사 시점
실험은 순화 완료 후 총 6일간(2025년 6월 20일–26일) 수행되었다. 처리는 대조구와 건조 스트레스 처리구의 2처리로 구성하였다. 실험 시작일에 일괄 관수를 실시한 후, 대조구는 2일 간격으로 정상 관수하였으며, 건조 스트레스 처리구는 4일간 무관수 처리하여 건조 스트레스를 유도하였다. 건조 4일차 측정 직후 회복관수를 실시하고 2일 뒤 두 처리구를 동일하게 조사하였다. 조사는 총 4회 수행하였으며, 조사 시점은 일괄 관수일(6/20), 건조 3일차(6/23), 건조 4일차(6/24, 회복관수 직전), 회복관수 2일차(6/26)였다.
생육 조사
각 조사 시점에서 지상부 생육 특성으로 엽온(°C), 초장(cm), 경경(mm), SPAD 값, 엽면적(cm²), 잎 및 줄기의 생체중과 건물중(g)을 측정하였다. 엽온은 적외선 온도계(IR-302, Custom Co. Ltd., Tokyo, Japan)를 이용하여 제1본엽 중앙부를 5cm 거리에서 측정하였다. 초장은 지표면으로부터 생장점까지의 길이를 자로 측정하였으며, 경경은 디지털 캘리퍼스(CD-20CPX, Mitutoyo Co. Ltd., Kawasaki, Japan)를 이용하여 지제부 상단 1cm 지점에서 측정하였다. SPAD 값은 휴대용 엽록소 측정기(SPAD-502 Plus, Konica Minolta Inc., Tokyo, Japan)를 이용하여 제1, 2, 3본엽 중앙부에서 각 1회씩 측정하였으며, 개체당 3회 측정값의 평균을 대표값으로 사용하였다. 엽면적은 엽면적 측정기(LI-3000, LI-COR Inc., Lincoln, NE, USA)를 이용하여 측정하였다. 생체중과 건물중은 전자저울(EW220-3NM, Kern & Sohn GmbH., Balingen, Germany)을 이용하여 측정하였으며, 건물중은 시료를 70°C에서 72시간 건조한 후 측정하였다. 측정된 값을 이용하여 엽수분함량(Leaf water content, LWC, %)은 다음 식에 따라 산출하였다(RDA 2012).
LWC(%) = {(잎 생체중 – 잎 건물중) / 잎 생체중} × 100
지하부 특성으로는 배지함수량(Substrate water content, SWC, %), 뿌리돌림(root ball formation), 총 뿌리 길이(cm), 총 뿌리 표면적(cm²), 평균 근경(mm), 뿌리 부피(cm³), 뿌리 생체중 및 건물중(g)을 조사하였다. SWC는 다음 식에 따라 중량법으로 산출하였다(RDA 2012).
SWC(%) = {(배지 습윤 중량–배지 건조 중량) / 배지 습윤 중량} × 100
뿌리 형태적 특성은 스캐너(Epson Expression 12000XL, Seiko Epson Co. Ltd., Nagano, Japan)로 촬영한 후 영상분석 프로그램(WinRhizo Pro 2020, Regent Instruments Inc., Sainte-Foy, QC, Canada)을 이용하여 분석하였다. 뿌리돌림 평가는 Park et al.(2025)의 방법을 참고하여 본 연구 조건에 맞게 1–3단계로 수정하였으며, 플러그 트레이에서 묘를 분리하였을 때의 뿌리와 배지 결속 정도를 기준으로 육안 평가하였다(Supplementary Fig. S1). 1단계는 뿌리돌림이 불량하여 뿌리와 배지가 쉽게 분리되는 상태, 2단계는 뿌리돌림이 부분적으로 형성되었으나 결속이 불안정한 상태, 3단계는 뿌리돌림이 충분히 형성되어 뿌리와 배지로 구성된 근괴가 안정적으로 유지되는 상태를 의미한다. 묘소질 지표(Dickson quality index, DQI)는 Dickson et al.(1960)의 방법에 따라 다음 식으로 산출하였다.
DQI = (지상부 건물중 + 지하부 건물중) / {(초장/경경) + (지상부 건물중/지하부 건물중)}
광합성 색소 분석
광합성 색소 함량은 Lichtenthaler and Wellburn(1983)의 방법에 준하여 분석하였다. 잎 시료를 동일 면적으로 채취한 후 생체중을 측정하였으며, 80% 아세톤 1.5mL에 색소를 추출하고 분광광도계(Libra-S22, Biochrom Co., London, UK)를 이용하여 470nm, 646nm 및 663nm에서 흡광도를 측정하였다. 총 엽록소 및 카로티노이드 함량(mg·g-1 FW)은 아래의 계산식에 따라 산출하였으며, 엽록소 a 및 b는 카로티노이드 함량 산출을 위한 중간값으로 계산하였다.
Chlorophyll a (µg·mL-1) = 12.21A663–2.81A646
Chlorophyll b (µg·mL-1) = 20.13A646–5.03A663
Total chlorophyll (mg·g-1 FW) = [(7.18A663 + 17.32A646) × V] / (1,000 × FW)
Carotenoids (mg·g-1 FW) = {[(1,000A470–3.27Chl a – 104Chl b) / 229] × V} / (1,000 × FW)
An: nm파장에서 측정한 흡광도, V: 색소 추출물의 최종 부피(mL), FW: 잎의 생체중(g)
엽록소 형광 측정
엽록소 형광 반응은 휴대용 형광측정기(FluorPen FP 100, Photon System Instruments, Drásov, Czech Republic)를 이용하여 측정하였다. 측정 전 클립을 이용해 30분간 암적응을 실시한 후, Fv/Fm(Maximum quantum efficiency of photosystem II), PI_ABS(Performance index on absorption basis), Qy(Effective quantum yield of photosystem II), NPQ_Lss(Non-photochemical quenching at light-adapted steady state) 및 Rfd(Fluorescence decrease ratio)를 산출하였다.
다분광 영상 분석
다분광 영상은 다분광 카메라(FS-3200T-10GE-NNC, JAI Corp., Copenhagen, Denmark)를 촬영용 밀폐 챔버(가로 100cm × 세로 70cm × 높이 150cm) 상단에 수직(top-view) 방향으로 설치하여 개체별로 촬영하였으며, 카메라에서 트레이 표면까지의 거리는 약 127cm로 고정되었다(Supplementary Fig. S2A). 광원은 챔버 내 LED 조명을 사용하였으며, Blue(450nm), Green(550nm), Red(650nm), NIR1(750nm), NIR2(830nm) 5개 파장대 영상을 취득하였다. 영상 촬영 시 White reference panel(13cm × 2.5cm)을 식물체와 함께 촬영 화면 내에 배치하였으며, 취득한 영상은 ENVI 5.3(L3Harris Geospatial, Broomfield, CO, USA) 프로그램을 이용하여 분석하였다(Supplementary Fig. S2B-E).
본 연구에서 원본 영상으로부터 취득된 각 파장대의 값은 원시 픽셀값으로 정의하였다. 원시 픽셀값은 반사율 99%의 White reference panel에서 취득한 파장대별 원시 픽셀값을 기준으로 다음 식에 따라 정규화하여 상대 반사율로 변환하였다.
정규화 상대 반사율 = (식물체의 원시 픽셀값 / White reference panel의 원시 픽셀값) × 0.99
별도의 black reference image 기반 dark-current correction은 수행하지 않았으며, 모든 영상은 동일한 촬영 거리, 광원, 노출 조건 및 챔버 조건에서 취득하여 처리 간 비교가 가능하도록 하였다. 이후 다분광 반사율 분석 및 식생지수 산출에는 원시 픽셀값이 아닌 정규화된 상대 반사율을 사용하였다.
식물체와 배경을 구분하기 위해 상대 반사율을 기반으로 NDVI image를 산출한 뒤, NDVI 임계값 0.33을 적용하여 NDVI 0.33–1.0에 해당하는 픽셀을 식물체 ROI(region of interest)로 추출하였다. 해당 임계값은 전체 조사 시점의 대표 영상에서 원본 영상, NDVI image 및 mask overlay를 비교하여 식물체와 배지, 트레이 및 배경이 안정적으로 분리되는지를 확인한 후 설정하였다. 특히 건조 스트레스가 가장 심했던 시점에서 잎과 배지의 구분이 가장 어려웠으므로, 해당 영상에서 식물체 픽셀이 과도하게 제외되지 않도록 threshold를 검토하였다. NDVI 0.33 미만의 픽셀은 식물체가 아닌 배경 영역으로 간주하여 분석 대상에서 제외하였으며, 평균 반사율 및 식생지수 산출 시 0 값으로 포함하지 않았다. 따라서 최종 반사율 및 식생지수는 NDVI threshold에 의해 추출된 식물체 ROI 픽셀만을 대상으로 산출하였다.
NDVI, GNDVI, NGRDI, PSRI, NDRE는 Table 1의 계산식에 따라 산출하였다. 이들 식생지수는 본 연구에 사용된 다분광 카메라의 Blue, Green, Red, NIR1 및 NIR2 밴드 조합으로 산출 가능한 지수 중에서 NDVI는 식생 활력과 수관 발달, GNDVI와 NDRE는 엽록소 관련 반응, NGRDI는 가시광 영역의 엽색 및 반사 특성 변화, PSRI는 노화 및 색소 손상 반응을 평가하기 위한 지표로 사용하였다.
Table 1.
Vegetation indices calculated from multispectral reflectance data for assessing drought stress responses in Rehmannia glutinosa Libosch. plug seedlings
| Vegetation index | Formulaz | Description | Reference |
|
NDVI (Normalized Difference Vegetation Index) | (NIR2–Red)/(NIR2+Red) | Vegetation biomass and canopy greenness | Rouse et al. (1974) |
|
GNDVI (Green Normalized Difference Vegetation Index) | (NIR2–Green)/(NIR2+Green) |
Chlorophyll content estimation using green band | Gitelson et al. (1996) |
|
NGRDI (Normalized Green-Red Difference Index) | (Green–Red)/(Green+Red) |
Vegetation greenness using visible bands only | Hunt et al. (2005) |
|
PSRIy (Plant Senescence Reflectance Index) | (Red–Blue)/NIR1 | Leaf senescence and carotenoid-to-chlorophyll ratio changes | Merzlyak et al. (1999) |
|
NDRE (Normalized Difference Red Edge Index) | (NIR2–NIR1)/(NIR2+NIR1) |
Early chlorophyll changes using red-edge band | Barnes et al. (2000) |
zNIR2 represents the near-infrared band (830 nm); NIR1 represents the red-edge band (750 nm); Red represents 650 nm, Green 550 nm, and Blue 450 nm.
yPSRI was calculated using Red (650 nm) and Blue (450 nm) as substitutes for the original R678 and R500 bands (Merzlyak et al. 1999), respectively, as these were the closest available bands in the multispectral camera used in this study.
통계 분석
통계 분석은 SAS 9.4(SAS Institute Inc., Cary, NC, USA)를 이용하여 수행하였다. 본 연구에서는 각 조사 시점에서 독립적으로 선발한 개체를 대상으로 생육 및 생리 지표를 조사하였으며, 일부 지표는 파괴조사로 분석하였으므로, 시점별 자료는 동일 개체의 반복측정 자료가 아닌 독립 표본으로 간주하였다. 처리(Treatment), 조사 시점(Date) 및 Treatment × Date 상호작용 효과를 검정하기 위해 two-way ANOVA를 수행하였다. 다만 일괄 관수 시점(6/20)은 건조 스트레스 처리를 적용하기 이전으로 두 처리구가 아직 실질적으로 분리되지 않은 시점이었으므로, two-way ANOVA에서는 해당 시점을 제외하고 건조 처리가 적용된 이후 시점(6/23, 6/24, 6/26)의 자료만을 대상으로 Treatment, Date 및 Treatment × Date 효과를 검정하였다. 또한 각 조사 시점에서 대조구와 건조 스트레스 또는 회복 처리구 간 차이를 확인하기 위해 Student’s t-test를 수행하였다. 유의수준은 p < 0.05로 설정하였다. 다분광 반사율 및 식생지수와 생육·생리 지표 간의 관계를 확인하기 위해 Pearson 상관분석을 수행하였다. 상관분석은 R 프로그램(version 4.4.0, R Core Team, Vienna, Austria)을 이용하여 수행하였다. 본 연구에서는 건조 스트레스 반응이 가장 뚜렷하게 나타난 6월 24일 자료를 대상으로 단일 시점 Pearson 상관분석을 수행하여 메인 결과로 제시하였다(n = 24). 또한 처리 전 12개체와 처리 후 각 조사일별 24개체를 포함한 전체 조사 시점의 자료를 통합하여 Pearson 상관분석을 수행하였으며(n = 84), 이 결과는 전반적인 경향을 파악하기 위한 탐색적 분석으로 보충자료에 제시하였다. 상관계수의 절댓값은 Cohen(1988)의 기준에 따라 |r| < 0.3은 약한 상관, 0.3 ≤ |r| < 0.5는 중간 수준의 상관, |r| ≥ 0.5는 높은 상관으로 해석하였다.
결과 및 고찰
건조 스트레스와 회복관수에 따른 지황 묘의 엽온 및 지상부 생육
건조 스트레스 기간(6/23–6/24) 동안 건조 스트레스 처리구의 엽온은 대조구에 비해 2–5°C 범위에서 유의하게 높았다(Fig. 1A). 이러한 경향은 회복관수 후(6/26)에도 유지되었다. 엽면적과 경경은 건조 스트레스 기간 동안 대조구 대비 유의적으로 낮았다(Fig. 1B and 1C). 회복관수 후(6/26) 엽면적은 대조구와 유의한 차이가 나타나지 않아 대조구 수준에 근접한 회복 양상을 보였으나, 경경은 여전히 유의하게 낮았다. SPAD 값은 건조 스트레스 기간(6/23–6/24) 동안 건조 스트레스 처리구에서 대조구보다 높은 경향을 보였으나, 회복관수 후(6/26)에는 대조구보다 유의적으로 낮아지는 역전 현상이 관찰되었다(Fig. 1D). 잎 생체중은 줄기 생체중에 비해 건조 스트레스에 의한 감소가 더 뚜렷하였으며, 건조 3일차(6/23)와 건조 4일차(6/24)에서 대조구와 유의한 차이를 나타냈다(Fig. 1E and 1F). 회복관수 후(6/26)에는 잎과 줄기 생체중 모두 유의적인 차이가 나타나지 않았다. 건물중의 경우, 잎은 건조 스트레스에 의해 유의적으로 감소한 반면(Fig. 1G), 줄기의 건물중은 유의적인 차이가 없었다(Fig. 1H).
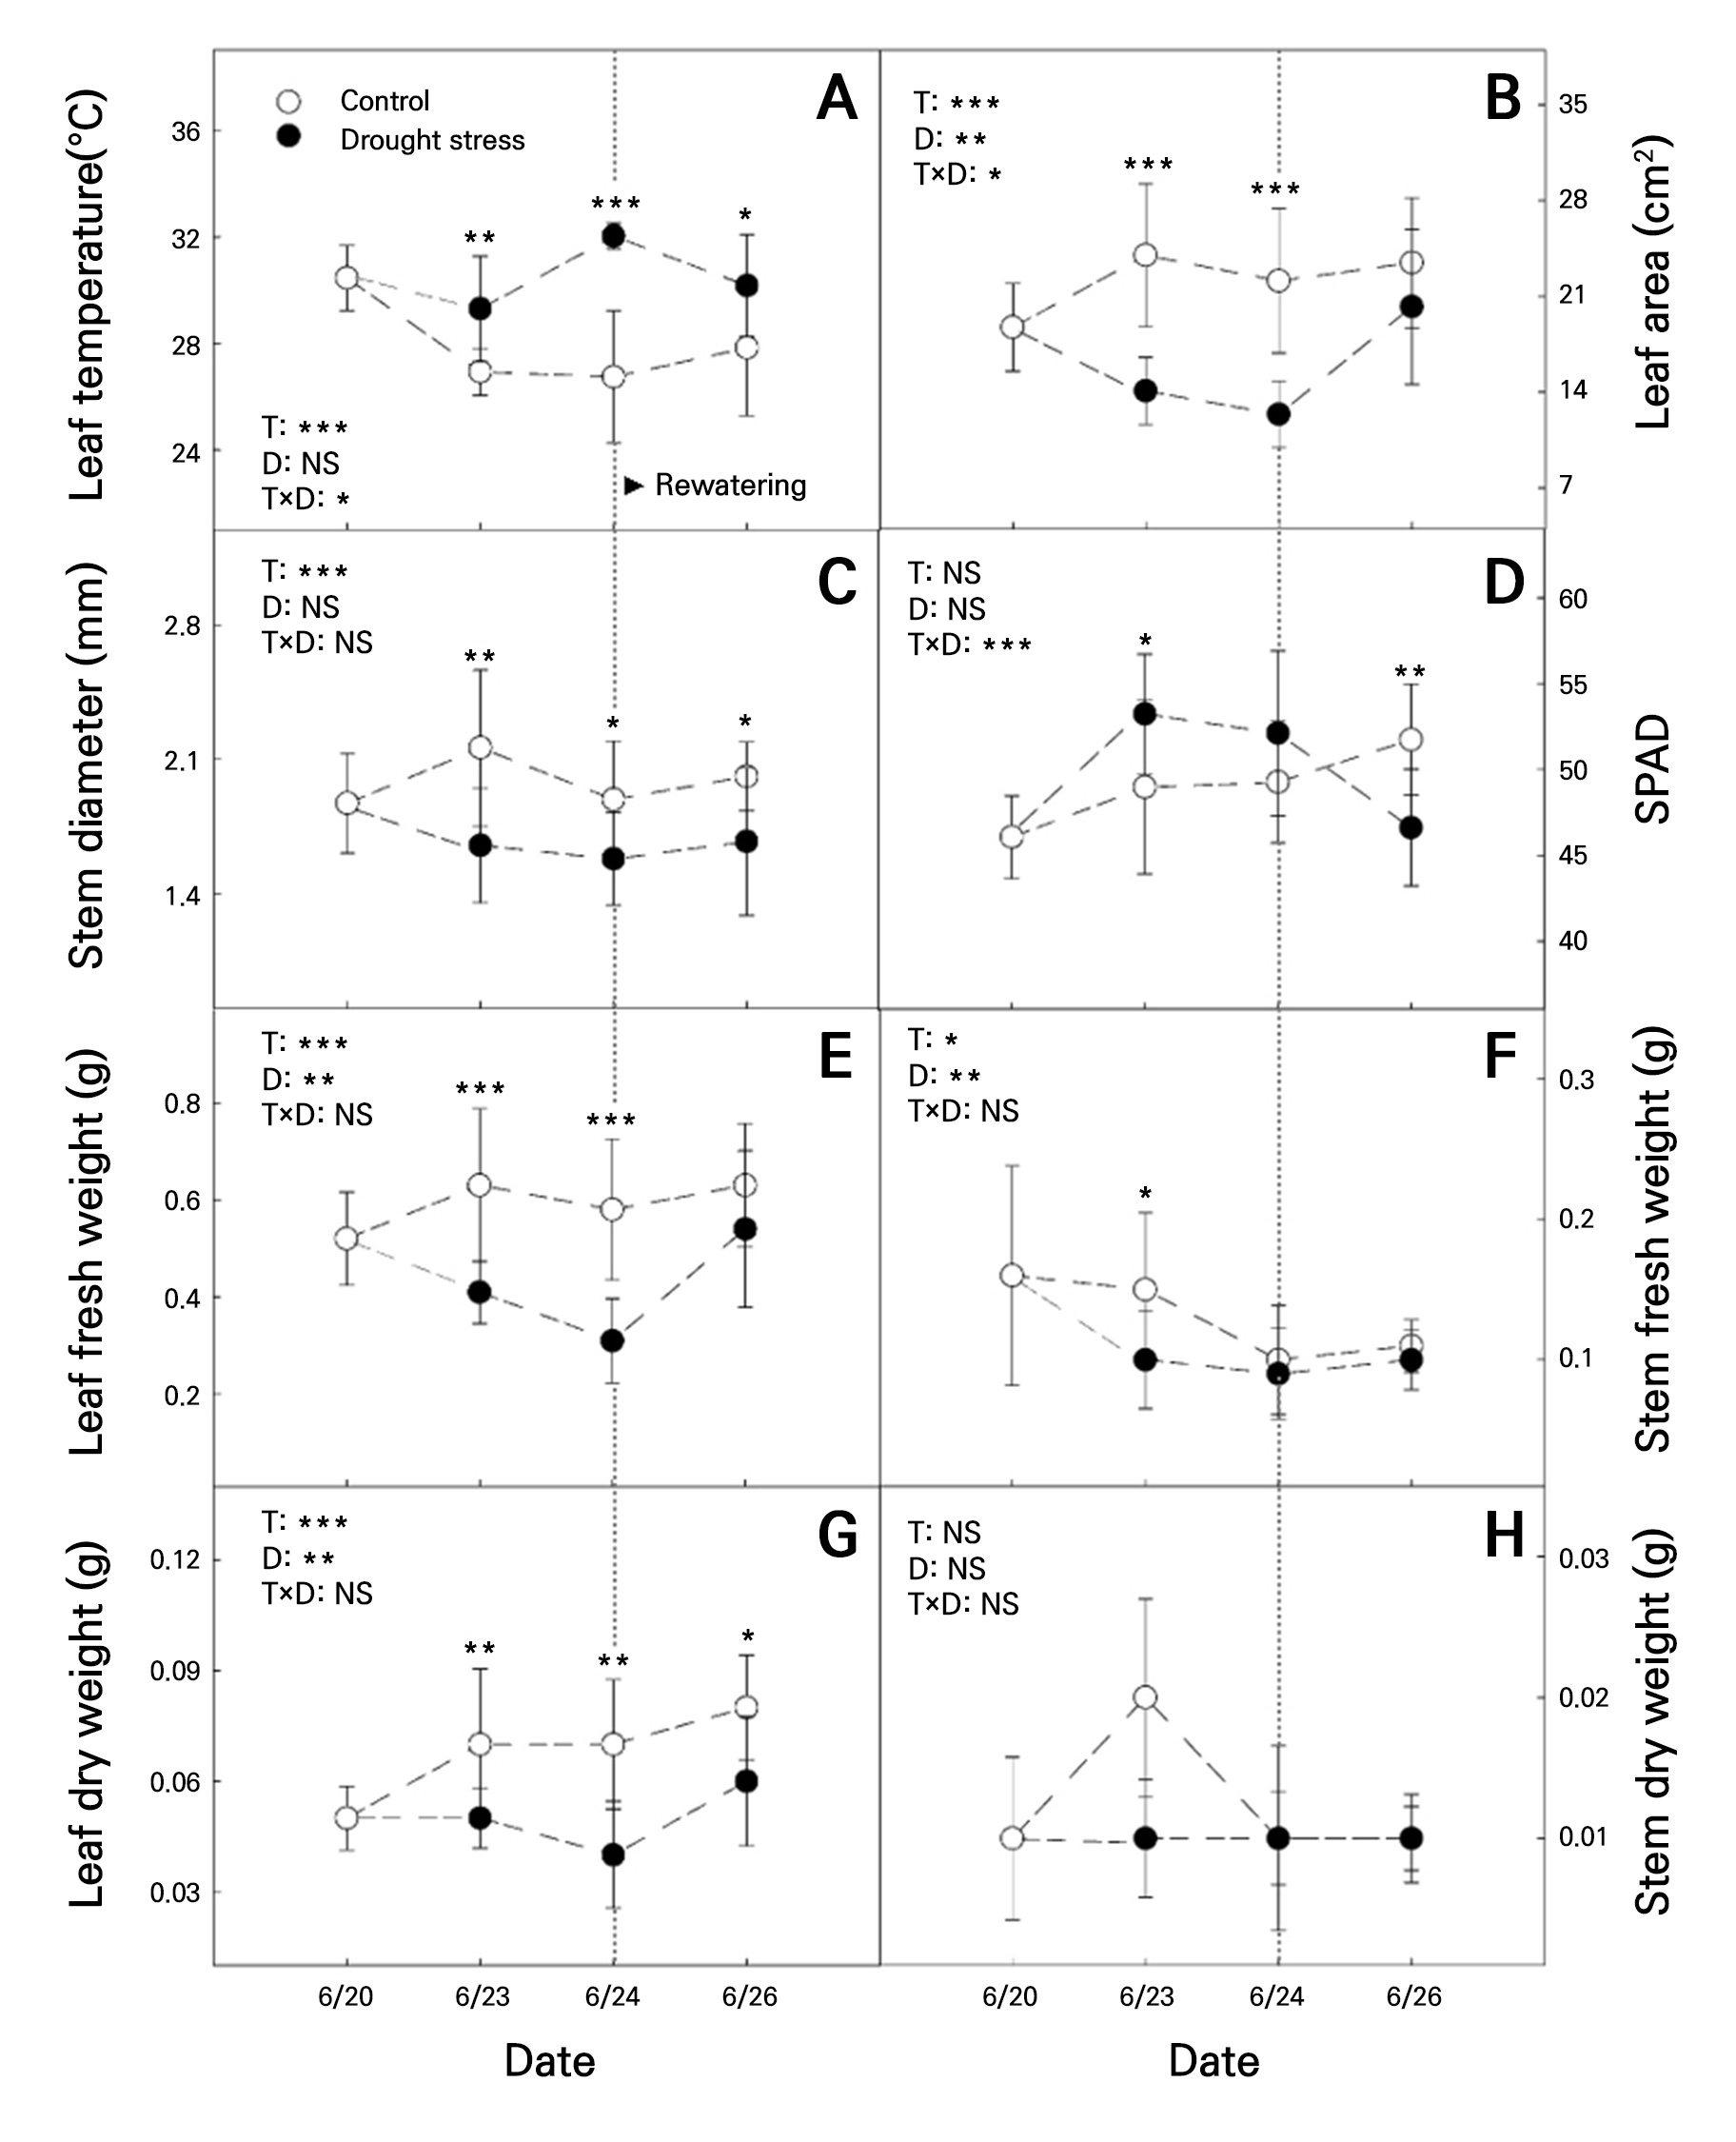
Fig. 1.
Leaf temperature (A) and shoot growth characteristics (B–H) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Data obtained on June 20 (before treatment) were excluded from the ANOVA. Vertical bars indicate standard errors of the means (n = 12). Asterisks indicate significant differences between control and drought stress seedlings on each sampling date according to Student’s t-tests (*, 33, and 33* at p ≤ 0.05, 0.01, and 0.001, respectively). T, treatment; D, measurement date; and T×D, interaction (NS, *, 33, 33* as above).
수분은 식물의 온도 조절, 광합성 산물 수송, 그리고 팽압 유지를 통한 형태 형성에 필수적인 요소이다. 본 연구에서 건조 스트레스 처리 시 발생한 엽온의 상승은 수분 부족에 따른 기공 폐쇄와 그로 인한 증산 냉각 효과의 감소 때문으로 판단된다(Chaves et al. 2003). 또한 지황은 포복형 생장 특성으로 인해 건조된 잎이 트레이 표면에 밀착되는 현상이 관찰되었으며, 이로 인해 회복관수 후에도 대류 냉각 및 증산 효율이 제한되어 엽온 회복이 지연된 것으로 판단된다. 엽면적 및 잎 생체중의 감소는 건조 스트레스에 따른 세포 내 수분 함량 감소와 팽압 저하로 인해 세포 신장 및 분열이 일시적으로 억제된 결과로 해석되며(Taiz et al. 2015), 이후 회복관수 시 이러한 생장 저해가 완화된 것으로 판단된다. 잎의 건물중은 유의적으로 감소한 반면 줄기 건물중에서는 유의한 차이가 나타나지 않은 결과는 기관 간 생리적 반응 차이에 기인한 것으로 해석될 수 있다. 건조 스트레스 조건에서는 광합성 억제로 인해 전체 탄소 동화량이 감소하며, 그 결과 잎과 뿌리와 같은 생장 활성이 높은 기관에서 생장 억제가 우선적으로 나타나는 경향이 있다(Chaves et al. 2003). 또한 잎은 증산이 활발한 대사 기관으로 수분 부족에 민감하게 반응하는 반면, 줄기는 구조적 탄수화물의 비중이 높고 대사 활성이 상대적으로 낮은 기관으로 알려져 있어(Schulze et al. 2019), 단기적인 수분 스트레스 조건에서 잎에 비해 건물중 변화가 제한적으로 나타난 것으로 판단된다.
건조 스트레스와 회복관수에 따른 지황 묘의 광합성 색소 특성
건조 스트레스 기간 중 SPAD 값의 일시적 증가와 회복관수 후 감소로 나타난 역전 현상의 생리적 의미를 확인하기 위해 총 엽록소 및 카로티노이드 함량을 분석하였다(Figs. 1D and 2). 건조 스트레스 기간 동안 총 엽록소 및 카로티노이드 함량은 처리 간 유의적인 차이를 보이지 않았으나, 회복관수 후에는 건조 스트레스 처리구에서 모두 유의적으로 낮았다. 또한 회복관수 후 건조 스트레스 처리구의 일부 개체에서 잎의 황화가 육안으로 관찰되었다(data not shown). 이러한 결과는 건조 3일차(6/23)에 관찰된 SPAD 증가가 실제 광합성 색소 함량 증가에 기인한 것이 아니며, 회복관수 후(6/26)의 SPAD 감소는 광합성 색소 함량의 실제 감소와 관련되었을 가능성을 시사한다(Figs. 1D and 2).
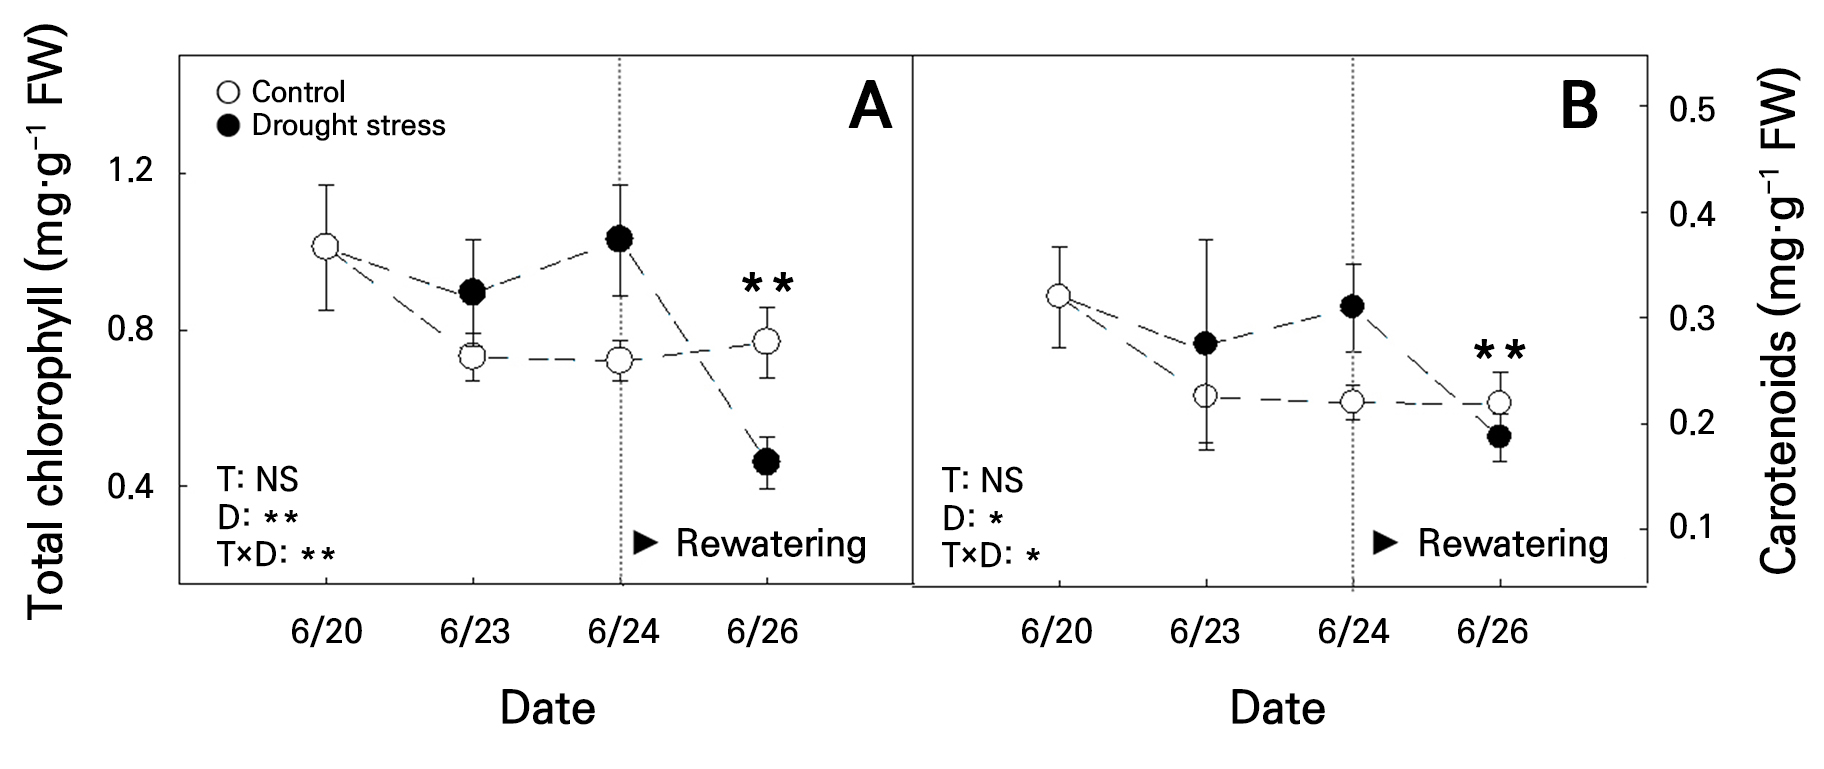
Fig. 2.
Total chlorophyll (A) and carotenoid (B) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Vertical bars indicate standard errors of the means (n = 6). Statistical notations are as described in Fig. 1.
앞서 언급한 바와 같이 건조 스트레스 기간 동안 총 엽록소 및 카로티노이드 함량은 처리 간 유의적인 차이를 보이지 않았음에도 SPAD 값이 일시적으로 증가한 것은(Figs. 1D and 2), 실제 색소 함량 변화보다는 잎의 수분 감소 및 구조 변화에 따른 광학적 효과에 기인한 것으로 해석된다(Marenco et al. 2009). SPAD 값은 엽록소에 의한 적색광 흡수를 기반으로 산출되지만, 잎의 두께, 조직 구조 및 수분 상태와 같은 잎의 물리적 특성에 의해서도 영향을 받는 것으로 알려져 있다(Marenco et al. 2009; Parry et al. 2014). 따라서 건조 스트레스에 따른 세포 팽압 저하와 조직 수분 감소로 잎의 구조 및 광 산란 특성이 변화하면서 동일한 측정 면적 내 엽록소의 상대적 흡광 특성이 달라졌고, 이로 인해 실제 광합성 색소 함량의 변화 없이 SPAD 값이 증가한 것으로 판단된다. 회복관수 후 건조 스트레스 처리구에서 엽록소 및 카로티노이드 함량이 유의적으로 낮은 것은 건조 스트레스 기간 동안 엽록소 생합성 저해 및 분해 촉진이 점진적으로 누적된 결과로 해석된다(Hendry and Price 1993). 건조 기간 중에는 실제 색소 함량에 유의적 변화가 없었음에도 광학적 효과로 인해 SPAD 값이 일시적으로 증가하였으나, 회복관수 후에는 세포 재팽창으로 광학적 효과가 해소되는 동시에 건조 스트레스 기간 동안 누적된 생합성 저해 및 분해 촉진으로 인한 실제 색소 감소가 SPAD 값에 반영되어, 대조구보다 높았던 SPAD 값이 오히려 낮아지는 역전 현상으로 나타난 것으로 판단된다. 또한 회복관수 후 일부 개체에서 관찰된 잎의 황화는 건조 스트레스 동안 유도된 산화 스트레스가 회복 과정에서 광합성 색소의 분해 또는 손상으로 이어졌을 가능성을 시사한다(Cruz de Carvalho 2008; Anjum et al. 2011).
건조 스트레스와 회복관수에 따른 지황 묘의 배지함수량, 지하부 생육 특성 및 묘소질
대조구의 배지함수량은 60–80% 수준으로 유지된 반면, 건조 스트레스 시 배지함수량은 건조 3일차(6/23)에 39.8%, 4일차(6/24)에는 32.5%로 대조구에 비해 유의적으로 낮았다(Fig. 3A). 뿌리돌림, 총 뿌리 길이, 총 뿌리 표면적은 건조 3일차(6/23)에는 처리 간 유의적 차이가 없었으나, 건조 4일차(6/24)에는 대조구 대비 유의적으로 감소하였다. 평균 근경, 뿌리 부피 및 뿌리 생체중은 건조 3일차(6/23)부터 대조구 대비 유의적으로 감소하였다. 그러나 회복관수 후(6/26)에는 이 지표들에서 처리 간 유의한 차이가 나타나지 않아 대조구 수준에 근접하는 회복 양상을 보였다(Fig. 3A–3G). 반면, 뿌리 건물중은 회복관수 후(6/26)에도 대조구에 비해 유의적으로 낮은 값을 보였다(Fig. 3H). 지상부와 지하부 생육 지표를 종합한 묘소질 지표인 DQI는 건조 3일차(6/23) 및 4일차(6/24)에 건조 스트레스 처리구가 대조구에 비해 유의적으로 낮았으며, 회복관수 후(6/26)에도 유의적으로 낮은 값이 지속되었다(Fig. 4).
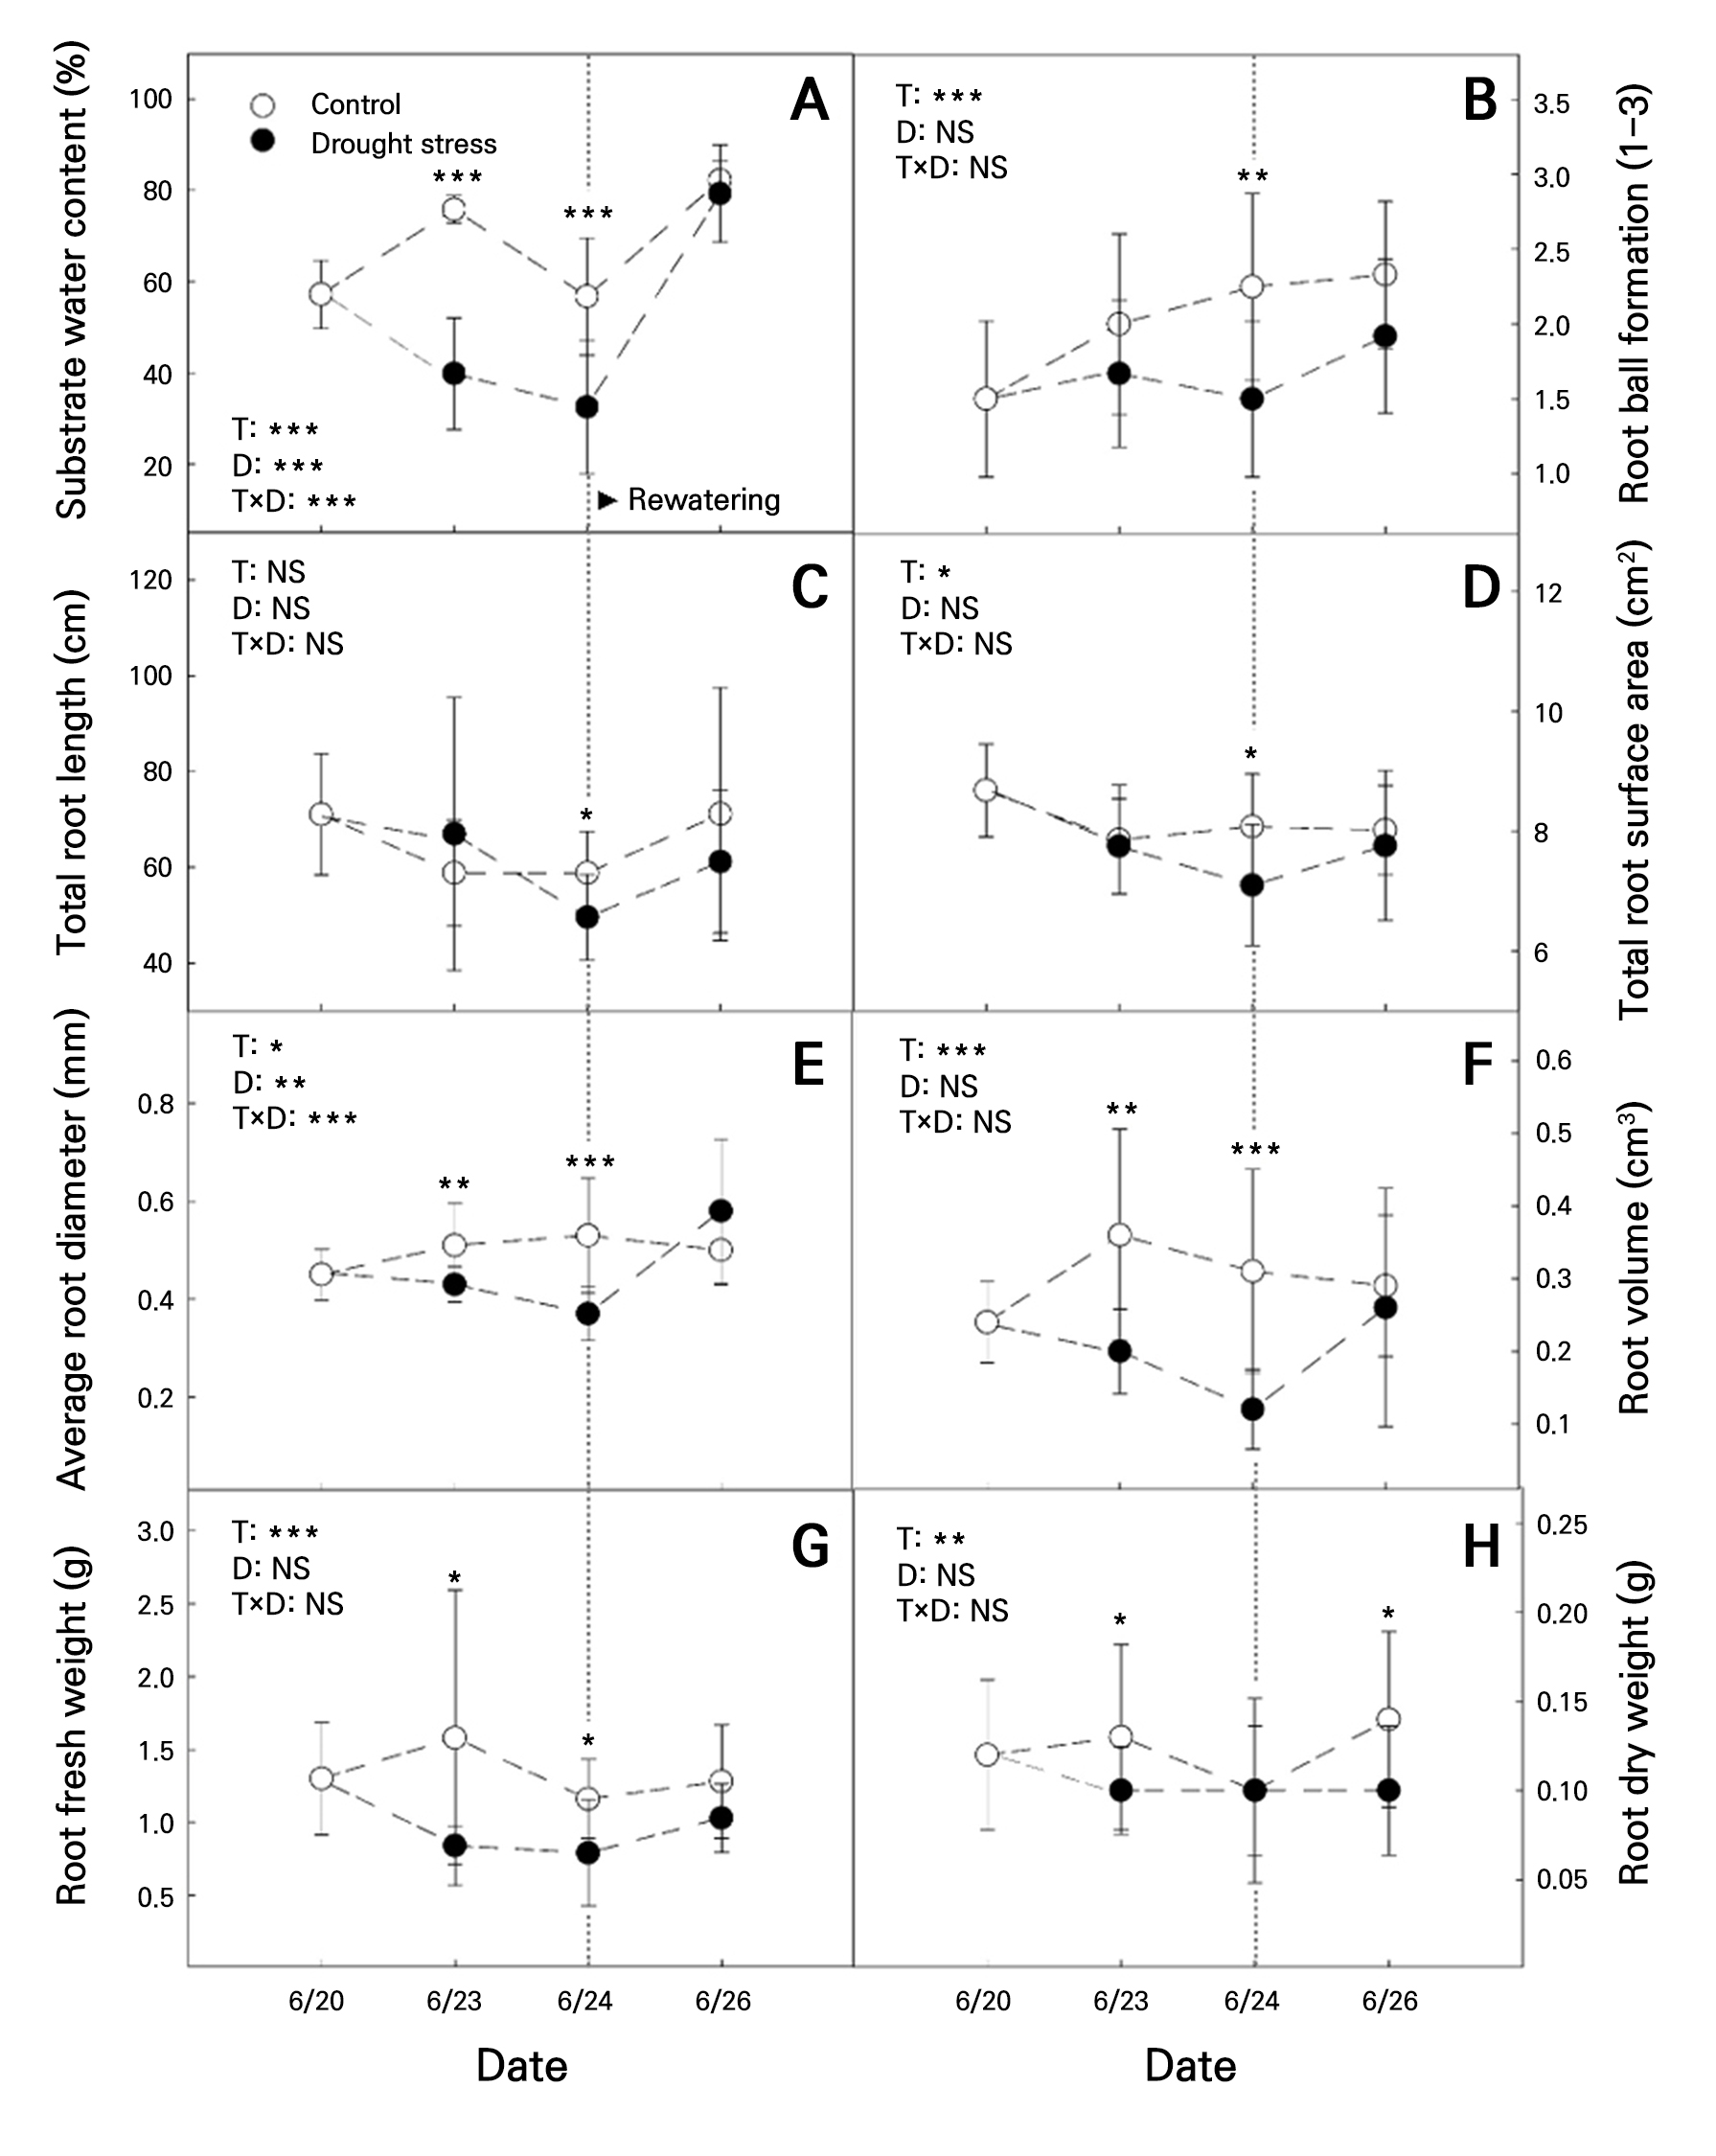
Fig. 3.
Substrate water content (A) and root growth characteristics (B–H) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Vertical bars indicate standard errors of the means (n = 12). Statistical notations are as described in Fig. 1.
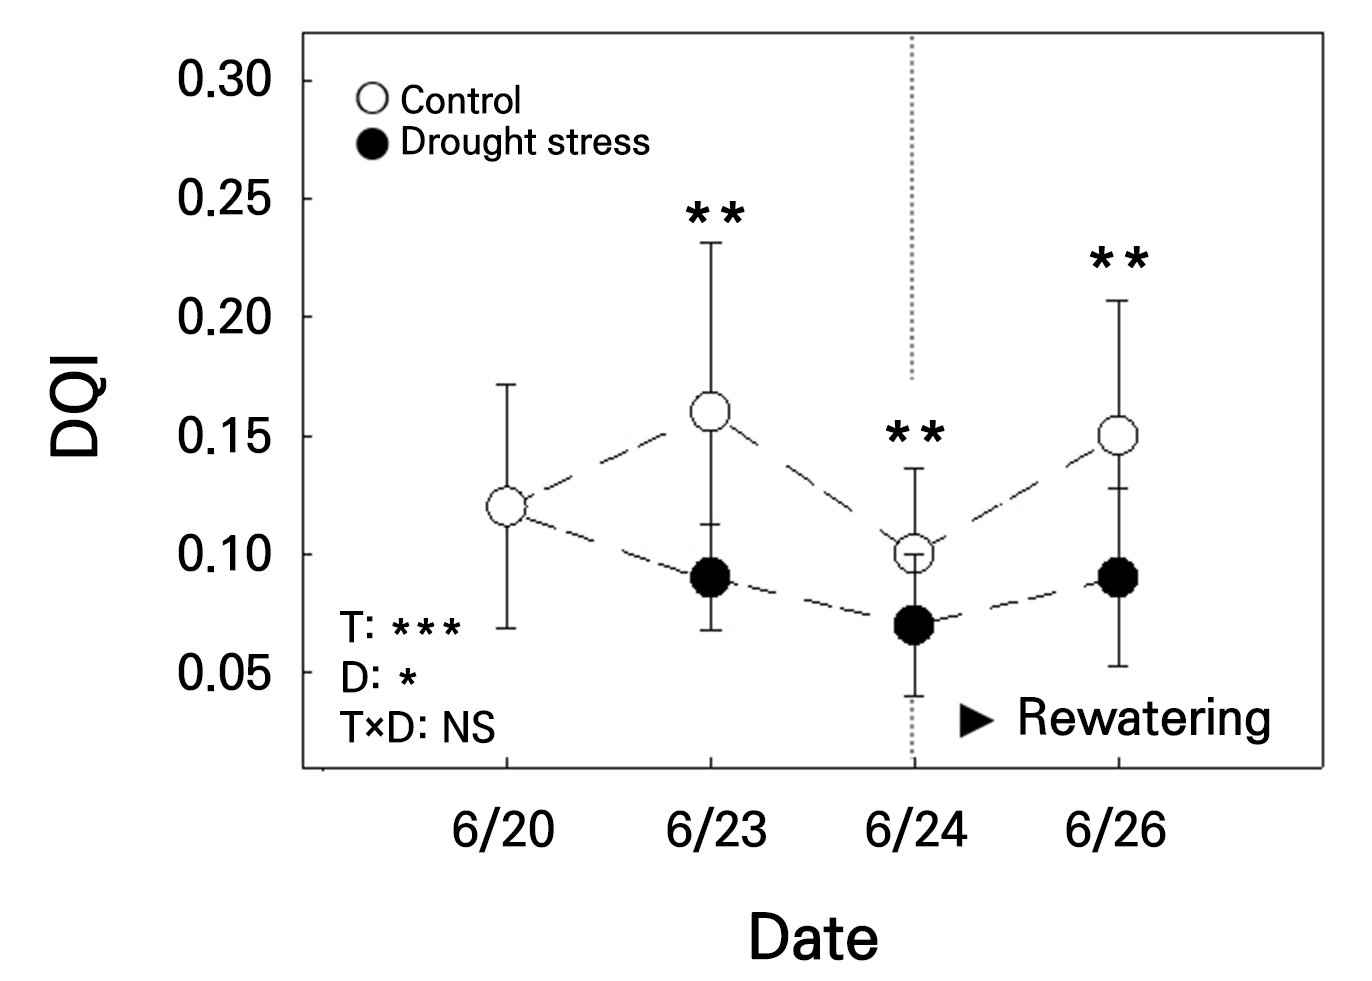
Fig. 4.
Dickson quality index (DQI) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Vertical bars indicate standard errors of the means (n = 12). Statistical notations are as described in Fig. 1.
회복관수 후 뿌리돌림, 총 뿌리 길이, 총 뿌리 표면적, 평균 근경, 뿌리 부피 및 뿌리 생체중이 대조구 수준에 근접하는 양상을 보인 것은 수분 공급 재개에 따른 뿌리 조직의 수분 상태와 세포 팽압 회복에 관련된 것으로 판단되며(Hsiao and Xu 2000), 지황 뿌리의 형태적 특성이 단기 건조 스트레스 이후 비교적 빠르게 회복될 가능성을 시사한다(Sharp et al. 2004). 그러나 뿌리 건물중은 회복관수 이후에도 대조구 대비 유의적으로 낮은 상태가 지속되었는데, 이는 뿌리의 수분 상태 및 형태적 특성의 회복과 실질적인 건물 축적 사이에 시차가 존재할 수 있음을 보여준다. 건조 스트레스 기간 동안 지상부의 광합성 억제와 대사 저하로 인해 뿌리로의 동화산물 공급이 감소하였고, 단기간의 회복관수만으로는 이를 보완하기에 충분하지 않았던 것으로 판단된다(Farooq et al. 2009). DQI의 감소는 건조 스트레스에 따른 잎 건물중 및 뿌리 건물중의 유의적 감소가 주된 원인으로 작용하였으며(Figs. 1G and 3H), 경경 감소로 인한 초장/경경 비율 증가도 DQI 저하에 기여한 것으로 판단된다(Fig. 1C). 회복관수 후에도 지속된 뿌리 건물중 감소 및 DQI 저하는 단기 건조 스트레스라 할지라도 광합성 억제로 인한 동화산물 공급 제한이 회복관수 이후에도 지속되어 묘의 전반적인 소질에 부정적인 영향을 미칠 수 있음을 시사한다.
건조 스트레스와 회복관수에 따른 지황 묘의 엽록소 형광 반응
건조 3일차(6/23)에는 대조구와 건조 스트레스 처리구 간 Fv/Fm, PI_ABS, NPQ_Lss 및 Rfd에서 유의적 차이가 나타나지 않았다(Fig. 5). 그러나 건조 4일차(6/24)에는 건조 스트레스 처리구에서 NPQ_Lss와 Rfd가 모두 유의하게 낮았다. 회복관수 후(6/26)에는 NPQ_Lss와 Rfd는 처리 간 유의적인 차이가 나타나지 않았으나, PI_ABS는 건조 스트레스 처리구에서 대조구보다 유의적으로 낮게 나타났다. 한편, Fv/Fm은 건조 스트레스 기간 및 회복관수 후 각 조사 시점에서 처리 간 유의적 차이를 나타내지 않았다(Fig. 5A). 또한 Qy는 대조구에서 0.10–0.14, 건조 스트레스 처리구에서 0.07–0.13 범위를 나타내었으며, 처리 간 유의적 차이는 나타나지 않았다(data not shown).
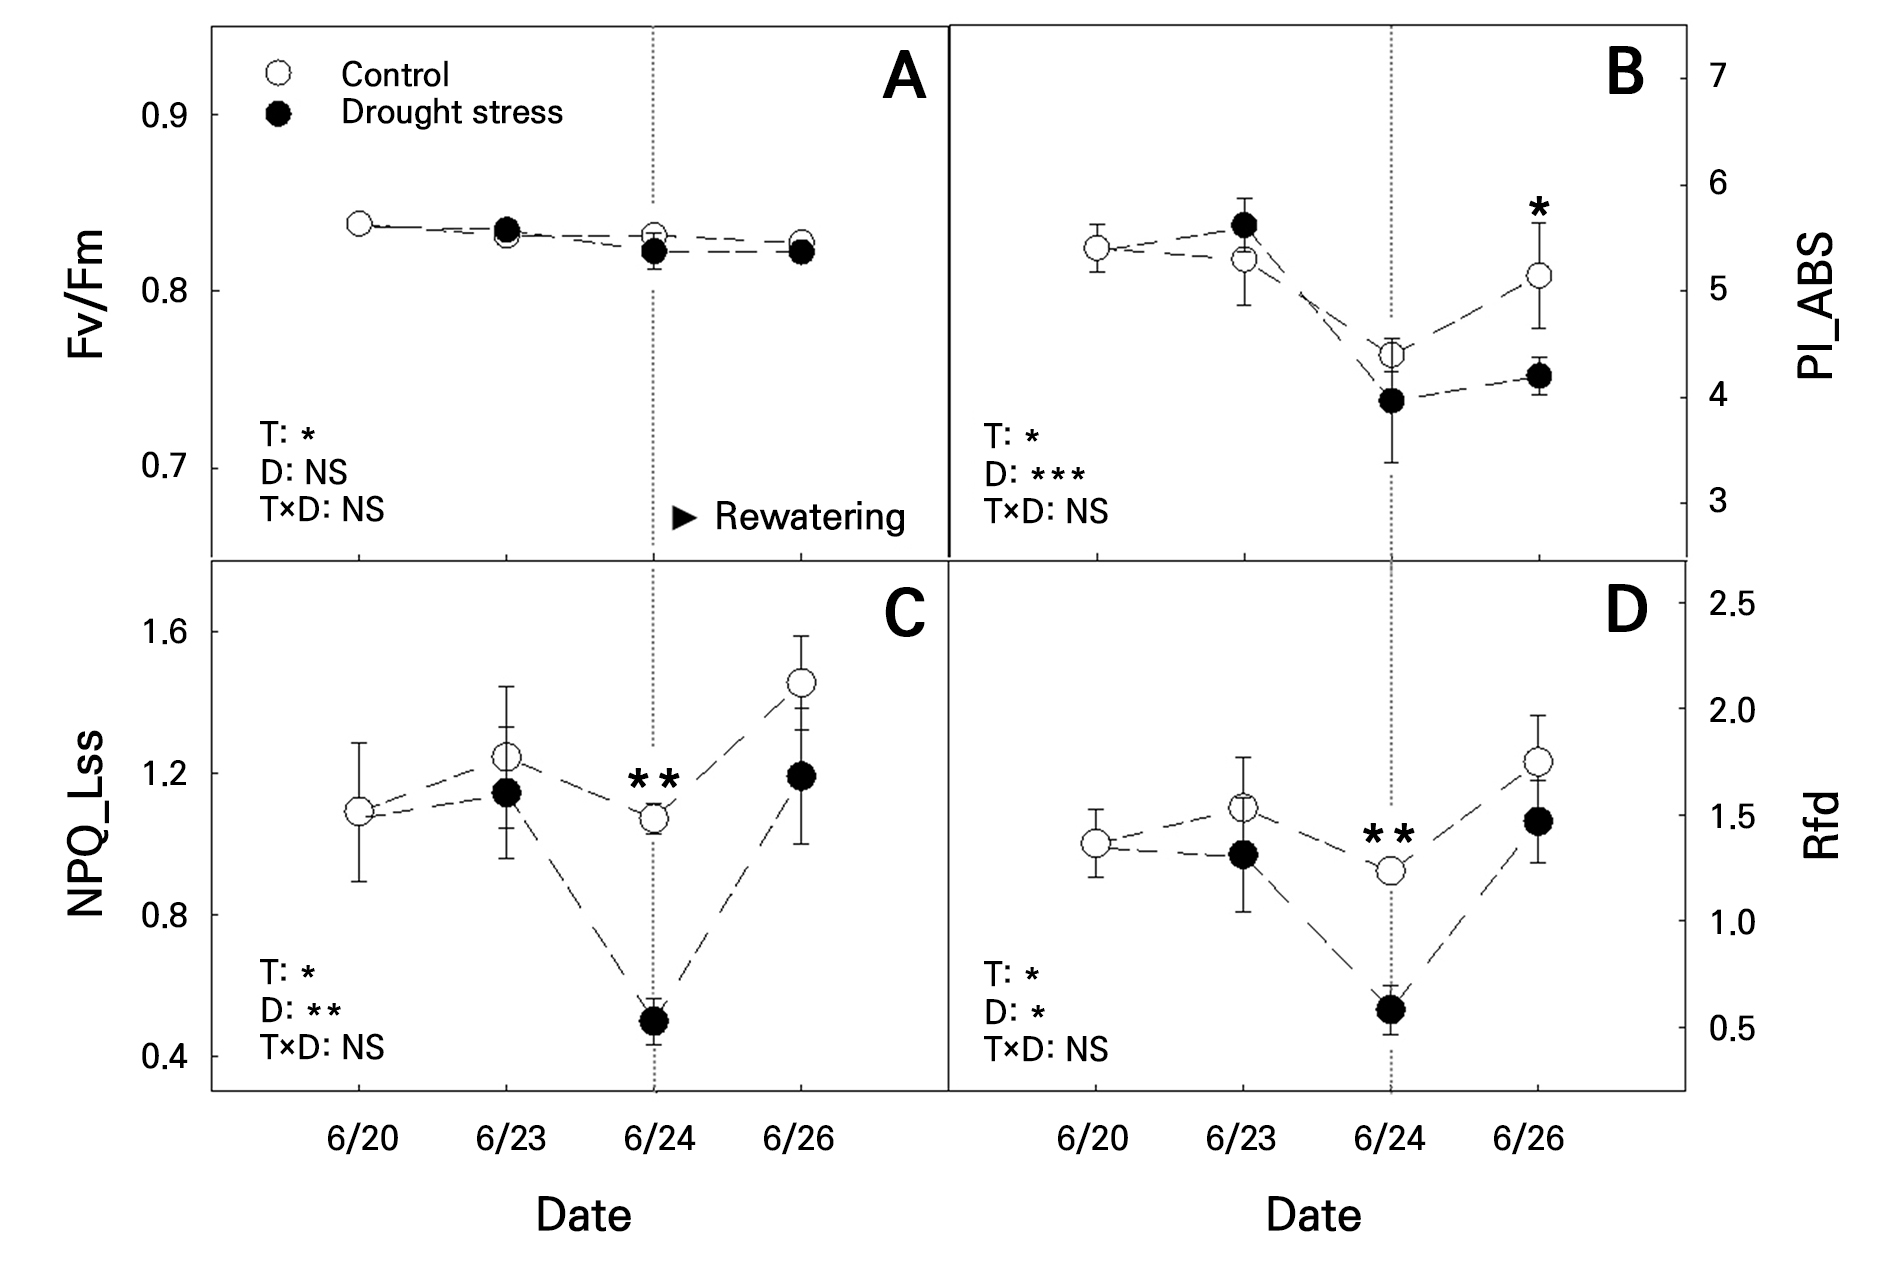
Fig. 5.
Maximum quantum yield of PSII (Fv/Fm, A), performance index (PI_ABS, B), non-photochemical quenching in a light-adapted steady state (NPQ_Lss, C), and fluorescence decrease ratio (Rfd, D) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Vertical bars indicate standard errors of the means (n = 6). Statistical notations are as described in Fig. 1.
엽록소 형광은 식물의 광합성 기구 상태를 비파괴적으로 진단하는 데 널리 이용된다(Baker 2008). Fv/Fm은 암적응 상태에서 PSII의 최대 광화학 효율을 나타내는 지표이며, Qy는 광적응 상태에서 실제 광화학 반응에 이용되는 에너지의 비율을 반영한다. 본 연구에서 Fv/Fm은 0.8 이상의 수준으로 유지되었으며, 각 조사 시점의 처리 간 비교에서는 유의적 차이가 나타나지 않았다. Qy에서도 처리 간 유의적 차이가 나타나지 않았다. 이는 본 연구의 단기 건조 스트레스가 PSII 반응중심의 최대 광화학 효율과 광적응 상태의 PSII 광화학 효율을 뚜렷하게 저하시킬 정도의 영향을 미치지는 않았음을 의미한다.
반면 PI_ABS는 흡수된 에너지 기반의 PSII 성능을 종합적으로 나타내는 지표로, Fv/Fm만으로는 확인하기 어려운 활성 반응중심, 에너지 포획 및 전자전달을 포함한 PSII의 기능적 상태를 반영할 수 있다(Strasser et al. 2004). 본 연구에서 PI_ABS는 건조 스트레스 기간 동안 유의적 차이를 나타내지 않았으나, 회복관수 후에는 건조 스트레스 처리구에서 대조구보다 유의적으로 낮게 나타났다. 이는 회복관수 후 대조구의 PI_ABS가 증가한 반면 건조 스트레스 처리구에서는 증가 폭이 상대적으로 제한되었기 때문으로 보이며(Fig. 5B), 수분 공급이 재개된 이후에도 흡수 에너지의 포획과 전자전달을 포함한 PSII의 종합적 기능에 건조 스트레스의 영향이 일부 남아 있었을 가능성을 시사한다.
NPQ_Lss는 과잉 광에너지를 열로 방산하는 광보호 능력을 반영하는 지표로, 초기 스트레스 조건에서는 유지되거나 증가할 수 있으나, 스트레스가 심화되어 광보호 조절 능력이 저하될 경우 감소할 수 있다(Müller et al. 2001). Rfd는 광적응 상태에서의 형광 감소 정도를 기반으로 광합성 기구의 활력을 나타내는 지표로, 값이 높을수록 광합성 기구의 기능적 활력이 높은 상태를 의미한다(Lichtenthaler and Miehé 1997). 건조 3일차(6/23)까지 NPQ_Lss와 Rfd에서 유의적 차이가 없었던 것은 초기 수분 스트레스 조건에서는 광보호 기작과 광합성 기구의 기능이 비교적 유지되었기 때문으로 판단된다(Maxwell and Johnson 2000). 반면 배지수분함량이 32.5%까지 감소한 건조 4일차(6/24)에서(Fig. 3A), Fv/Fm과 PI_ABS와 달리 NPQ_Lss와 Rfd가 모두 감소한 것은(Fig. 5A–5D), PSII 반응중심의 최대 광화학 효율 저하보다는 광적응 상태에서의 에너지 소산 조절 및 광합성 활력 저하가 먼저 나타난 결과로 해석된다(Müller et al. 2001; Baker 2008).
다만 건조 4일차(6/24)에 대조구에서도 PI_ABS, NPQ_Lss 및 Rfd가 이전 시점보다 낮아지는 경향을 보였다. 해당 시점에 대조구의 배지수분함량도 일시적으로 감소하였는데(Fig. 3A), 이는 대조구가 2일 간격으로 관수되었기 때문에 관수 주기 내 배지수분함량 변동이 반영된 결과로 판단된다. 따라서 건조 4일차(6/24) 대조구의 PI_ABS, NPQ_Lss 및 Rfd 감소는 대조구의 관수 주기에 따른 배지수분함량 감소의 영향이 일부 반영되었을 가능성이 있다.
회복관수 후 NPQ_Lss와 Rfd에서 처리 간 유의적 차이가 나타나지 않은 것은 단기 건조 스트레스에 따른 광보호 조절 및 광합성 활력의 변화가 회복관수 후 대조구 수준에 근접하는 양상을 보였음을 시사한다. 반면 PI_ABS는 NPQ_Lss 및 Rfd와 달리 회복관수 후에 오히려 처리 간 차이가 나타나, 지표에 따라 처리 간 차이가 확인되는 시점이 서로 달랐다. 또한 회복관수 후에도 잎과 뿌리 건물중 및 DQI가 대조구보다 낮았던 결과를 고려하면(Figs. 1G, 3H, and 4), 수분 공급 재개 이후에도 건조 스트레스 기간에 발생한 생리적 제한과 동화산물 축적 감소의 영향이 생육 및 묘소질에 남아 있었을 가능성이 있다.
종합하면, 단기 건조 스트레스 조건에서 Fv/Fm과 Qy로 나타나는 PSII의 광화학 반응 수행능은 전반적으로 유지된 반면, NPQ_Lss와 Rfd는 최대 건조 시점에서 감소하여 광보호 조절 및 광합성 활력의 저하를 반영하였다. 또한 PI_ABS는 회복관수 후 건조 스트레스 처리구에서 낮게 나타나, 수분 공급이 재개된 이후에도 흡수 에너지 기반의 종합적인 PSII 성능에 건조 스트레스의 영향이 일부 남아 있었을 가능성을 시사하였다. 따라서 지황 플러그묘의 단기 건조 스트레스 반응은 PSII의 최대 광화학 효율 저하보다는 광에너지 소산 조절, 광합성 활력 및 종합적 PSII 성능의 기능적 변화로 나타난 것으로 판단된다.
건조 스트레스와 회복관수에 따른 지황 묘의 다분광 반사율과 식생지수 변화
다분광 반사율의 변화
건조 스트레스 처리에 따른 다분광 반사율은 파장대별로 상이한 시계열 반응을 나타냈다(Fig. 6A–6E). Two-way ANOVA 결과, Blue, Green, Red 및 NIR1 반사율에서는 Treatment × Date 상호작용이 유의하여 건조 처리에 따른 반사율 변화 양상이 조사 시점에 따라 달라졌다. 반면 NIR2 반사율에서는 Treatment와 Date의 주효과가 유의하였으나 Treatment × Date 상호작용은 유의하지 않아, 전 조사 시점을 종합했을 때 건조 스트레스 처리구의 반사율이 전반적으로 낮았으며, 처리 간 차이의 정도는 조사 시점에 따라 크게 달라지지 않았음을 보여주었다. 시점별 비교에서는 건조 3일차(6/23)에 Blue, Green 및 Red 반사율에서 처리 간 차이가 나타나지 않은 반면, NIR1과 NIR2 반사율은 건조 스트레스 처리구에서 대조구보다 유의하게 낮았다. 건조 4일차(6/24)에는 Blue, Green, Red, NIR1 및 NIR2의 모든 파장대에서 건조 스트레스 처리구의 반사율이 유의하게 낮았다. 이러한 결과는 지황 플러그묘에서 근적외선 영역의 반사율 감소가 가시광 영역보다 먼저 나타났음을 보여주며, NIR 기반 반사율이 초기 수분 스트레스 진단에 활용될 가능성을 시사한다. 회복관수 후(6/26)에는 NIR1에서 처리 간 유의한 차이가 나타나지 않은 반면, NIR2는 건조 스트레스 처리구에서 계속 낮게 나타났으며, Red 반사율은 대조구보다 유의하게 높았다(Fig. 6C–6E). 이는 회복관수 이후의 반사율 반응이 파장대별로 서로 다르게 나타났음을 보여준다.
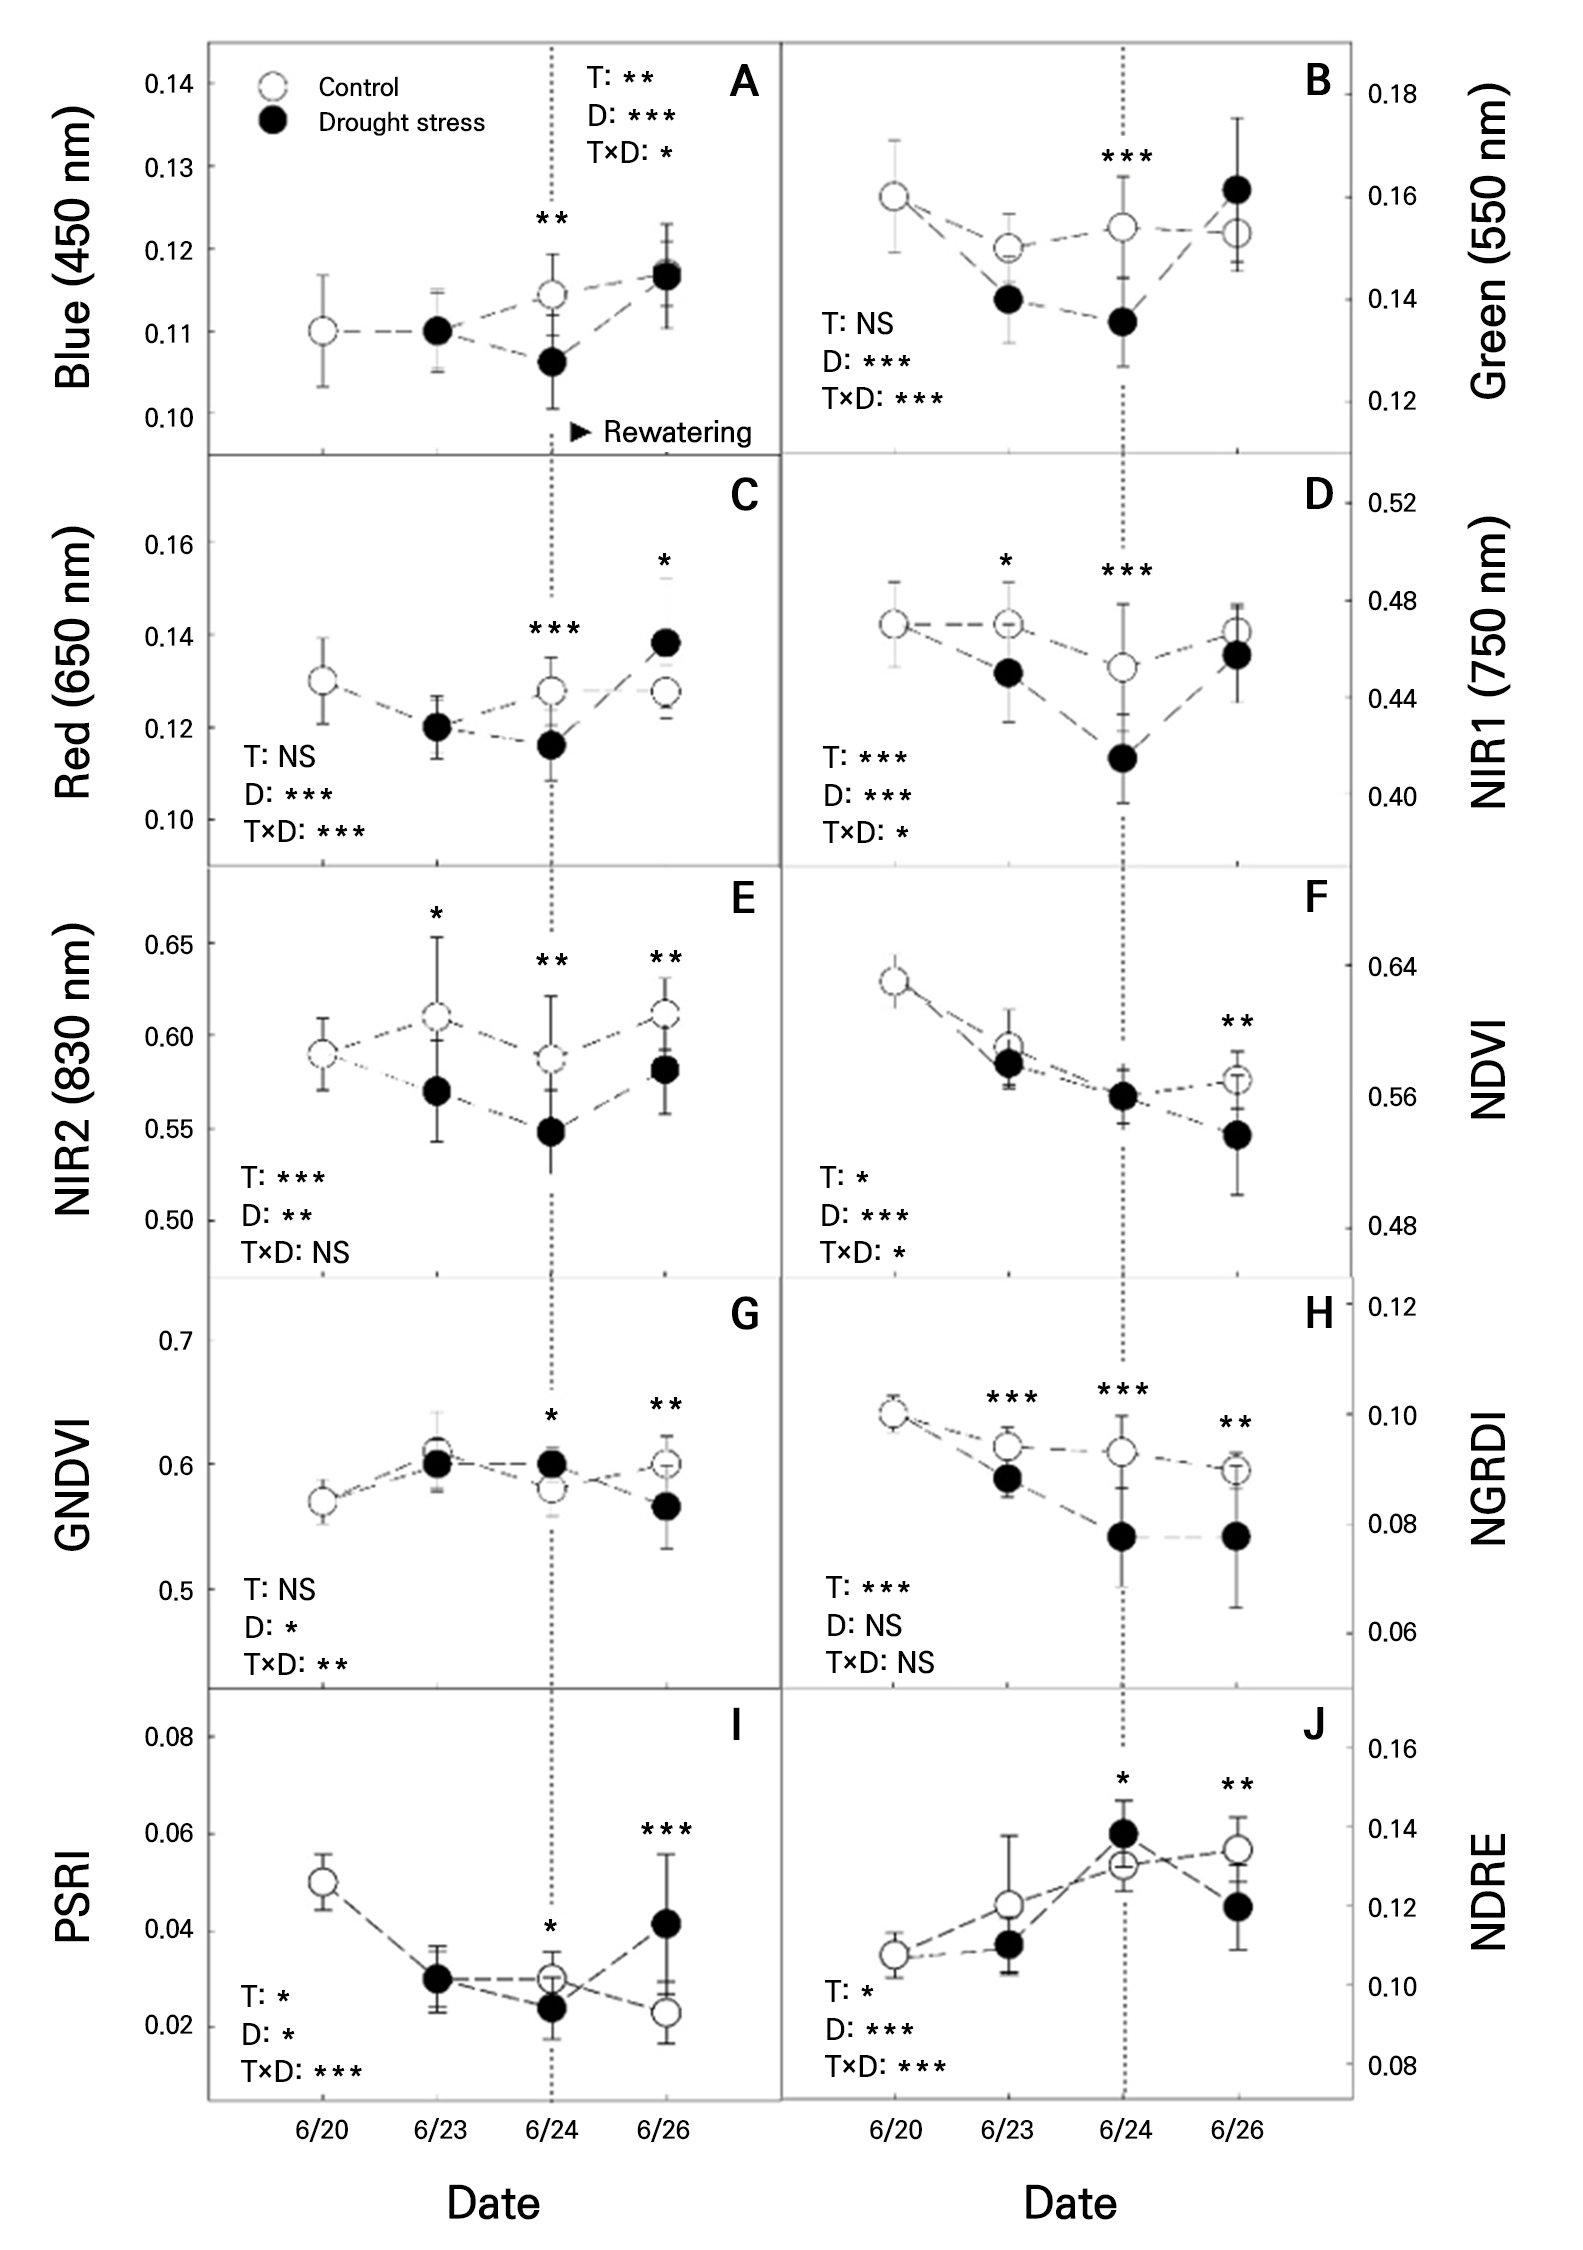
Fig. 6.
Multispectral reflectance (A–E) and vegetation indices (F–J) of Rehmannia glutinosa Libosch. seedlings under drought stress and rewatering. Drought-stressed seedlings were rewatered immediately after measurements on June 24 (indicated by the vertical dotted line). Vertical bars indicate standard errors of the means (n = 12). Statistical notations are as described in Fig. 1.
NIR 영역은 잎 내부 세포 간극 구조에 의한 광 산란을 반영하는 파장대로, 건조 스트레스 초기 단계에서 NIR 영역에서만 반사율 감소가 나타난 것은 세포 팽압 저하에 따른 세포 간극 감소로 광 산란이 감소한 결과로 해석된다(Gates et al. 1965; Jacquemoud and Ustin 2001). 이후 건조가 심화됨에 따라 가시광 영역인 Blue, Green 및 Red 반사율까지 감소한 것은 잎의 탈수와 팽압 저하에 따른 광학적 변화와 함께, 단위 면적당 색소의 상대적 농축으로 가시광 영역의 광 흡수가 증가한 결과로 해석된다. 가시광 영역은 잎 내부 구조에 의한 산란보다 엽록소 및 카로티노이드에 의한 광 흡수의 영향을 크게 받는 파장대이다(Carter and Knapp 2001; Jacquemoud and Ustin 2001). 본 연구에서 건조 스트레스 기간 동안 SPAD 값은 일시적으로 증가하였으나 총 엽록소 함량에는 유의적인 차이가 없었으므로, 가시광 반사율 감소는 색소 총량의 증가보다는 탈수에 따른 잎 조직 수축과 상대적 흡광 특성 변화에 의해 유도된 것으로 판단된다(Marenco et al. 2009; Parry et al. 2014).
회복관수 후 나타난 NIR1과 NIR2의 상이한 반응은 두 파장대가 반영하는 광학적 특성의 차이와 관련된 것으로 판단된다. NIR1(750nm)은 적색광 흡수 영역에서 근적외선 고반사 영역으로 전환되는 red-edge에 인접한 파장대이므로, 엽록소에 의한 광 흡수와 잎 내부 구조에 의한 광 산란의 영향을 함께 받을 수 있다(Curran et al. 1990; Jacquemoud and Ustin 2001). 따라서 회복관수 후 NIR1에서 처리 간 차이가 나타나지 않은 것은 수분 공급에 따른 세포 팽압 및 잎 내부 구조의 변화와 함께, 같은 시점에 나타난 Red 반사율 증가와 연계된 red-edge 인접 영역의 광학적 변화가 복합적으로 반영되었을 가능성이 있다. 반면 NIR2(830nm)는 잎 내부 세포 구조와 세포벽–세포간극의 굴절률 차이에 따른 광 산란의 영향을 상대적으로 크게 받으므로(Jacquemoud and Ustin 2001; Slaton et al. 2001), 회복관수 후에도 낮게 유지된 NIR2 반사율은 건조 스트레스에 의해 변화된 잎 내부의 산란 특성이 단기간 내에 완전히 회복되지 않았을 가능성을 시사한다.
식생지수의 변화
식생지수는 지수별로 상이한 반응을 나타냈다(Fig. 6F–6J). Two-way ANOVA에서 NDVI, GNDVI, PSRI 및 NDRE는 Treatment × Date 상호작용이 유의하였으며, NGRDI는 Treatment의 주효과만 유의하였다. 이는 건조 스트레스와 회복관수에 따른 반응 양상이 식생지수별로 달랐음을 보여준다. 시점별 처리 간 비교 결과, NDVI는 건조 스트레스 기간(6/23–6/24) 동안 처리 간 유의한 차이가 나타나지 않았다(Fig. 6F). 반면 NGRDI는 건조 3일차(6/23)부터 건조 스트레스 처리구에서 대조구보다 유의하게 낮아, 5개 식생지수 중 가장 이른 시점에 건조 스트레스 반응을 나타냈다(Fig. 6H). 건조 4일차(6/24)에는 GNDVI와 NDRE가 건조 스트레스 처리구에서 대조구보다 유의하게 높았으며, NGRDI와 PSRI는 대조구보다 유의하게 낮았다(Fig. 6G–6J). 회복관수 후(6/26)에는 PSRI가 건조 스트레스 처리구에서 대조구보다 유의하게 높았으며, NDVI, GNDVI, NGRDI 및 NDRE는 모두 대조구보다 유의하게 낮았다(Fig. 6F–6J).
NDVI는 식물 바이오매스 및 전반적인 식생 활력을 반영하는 지수로, 건조 기간 동안 처리 간 유의한 차이를 보이지 않았다. 건조 스트레스 기간에 NIR2와 Red 반사율에서는 시점에 따라 처리 차이가 나타났으나, NDVI에서는 유의한 처리 차이가 확인되지 않았다. 이는 본 연구 조건에서 NDVI의 초기 건조 스트레스에 대한 민감도가 제한적이었음을 보여주며, NDVI가 초기 수분 상태 변화보다는 바이오매스나 수관 구조의 영향을 크게 받는 특성과 관련된 것으로 해석된다(Sims and Gamon 2002; El-Hendawy et al. 2019).
NGRDI는 건조 3일차(6/23)부터 건조 스트레스 처리구에서 대조구보다 유의하게 낮아 다른 식생지수보다 이른 반응을 나타냈다. 같은 시점에 Green과 Red 반사율 모두 처리 간 유의한 차이는 나타나지 않았으나, Green 반사율은 Red 반사율보다 건조 스트레스 처리구와 대조구 간 차이가 상대적으로 크게 나타나는 경향을 보였다. 이에 따라 건조 스트레스 처리구에서 Green과 Red 반사율 간의 차이가 작아졌으며, 이러한 파장 간 상대적 변화가 NGRDI에 반영되면서 개별 반사율에서는 나타나지 않았던 유의한 처리 차이로 나타난 것으로 판단된다. 한편 건조 3일차에 건조 스트레스 처리구의 SPAD 값은 대조구보다 일시적으로 높았으나, 총 엽록소 함량에는 유의한 차이가 나타나지 않았다. SPAD 값은 엽록소 함량뿐 아니라 잎의 두께와 수분 상태에도 영향을 받을 수 있으므로(Marenco et al. 2009), NGRDI의 차이는 실제 엽록소 함량의 변화보다는 초기 탈수에 따른 잎의 광학적 특성 변화가 Green과 Red 반사율에 서로 다르게 반영된 결과일 가능성이 있다. 따라서 NGRDI는 지황 플러그묘의 초기 건조 스트레스에 따른 광학적 변화를 조기에 반영하는 지표로 판단된다.
GNDVI와 NDRE는 건조 3일차에는 처리 간 유의한 차이가 나타나지 않았으나, 건조 4일차에는 건조 스트레스 처리구에서 대조구보다 유의하게 높았다. NIR1과 NIR2의 단일 반사율이 건조 3일차부터 대조구보다 낮았던 것과 달리, 두 지수의 처리 차이는 건조 4일차에 나타났다. 이는 NIR 단일 반사율과 NIR2를 다른 파장대와 조합한 식생지수의 반응 시점이 서로 달랐음을 보여준다. GNDVI와 NDRE는 각각 NIR2와 Green 또는 NIR1 간의 상대적 대비를 나타내며, 주로 엽록소 상태에 민감한 지수이다(Sims and Gamon 2002; Clevers and Gitelson 2013). 그러나 본 연구에서는 건조 초기 총 엽록소 함량에 처리 간 차이가 나타나지 않았다. 이후 건조가 심화되어 가시광 및 red-edge 인접 파장대까지 처리 차이가 확대되면서 구성 파장 간 상대적 관계도 달라졌고, 이에 따라 건조 4일차에 GNDVI와 NDRE에서 유의한 처리 차이가 나타난 것으로 해석된다. 따라서 두 지수가 대조구보다 높게 나타난 것은 엽록소 상태의 개선을 의미하기보다는, 심화된 탈수에 따른 파장별 광학적 반응의 차이가 지수에 반영된 결과로 판단된다.
PSRI는 카로티노이드 대 엽록소 비율의 증가를 반영하는 노화 및 색소 변화 지표이다(Merzlyak et al. 1999). 그러나 건조 4일차에는 건조 스트레스 처리구의 PSRI가 대조구보다 낮았으며, 같은 시점에 총 엽록소와 카로티노이드 함량에서도 처리 간 차이가 나타나지 않았다. 따라서 이 시점의 PSRI 차이를 노화 또는 색소 조성의 변화와 직접 연결하여 해석하기는 어렵다. 반면 회복관수 후에는 건조 스트레스 처리구의 PSRI가 대조구보다 높았으며, 같은 시점에 총 엽록소와 카로티노이드 함량은 모두 대조구보다 유의하게 낮았다. 이는 회복관수 후 나타난 색소 상태의 변화가 높은 PSRI와 관련되었을 가능성을 시사한다(Fig. 2).
종합적으로, 건조 3일차에는 NIR 반사율과 NGRDI에서 처리 간 차이가 먼저 나타났으며, 건조 4일차에는 가시광 반사율, 여러 식생지수 및 일부 엽록소 형광 지표로 그 차이가 확대되었다. 이러한 시계열 반응은 본 연구 조건에서 다분광 영상 기반 지표가 초기 탈수에 따른 잎의 광학적 변화를 일부 엽록소 형광 지표보다 이르게 반영했음을 보여준다.
건조 4일차(6/24)의 지황 묘 다분광 영상과 생육 지표 간 상관분석
다분광 반사율 및 식생지수와 지황 플러그묘의 생육·생리 지표 간 관계를 확인하기 위해, 건조 스트레스 반응이 가장 뚜렷하게 나타난 건조 4일차(6/24)의 자료를 대상으로 Pearson 상관분석을 수행하였다(Fig. 7). Cohen(1988)의 기준에 따라 중간 수준 이상(|r| ≥ 0.3)의 상관을 확인하되, 본문에서는 강한 상관(|r| ≥ 0.5)과 생리적으로 일관된 관계를 중심으로 해석하였다.
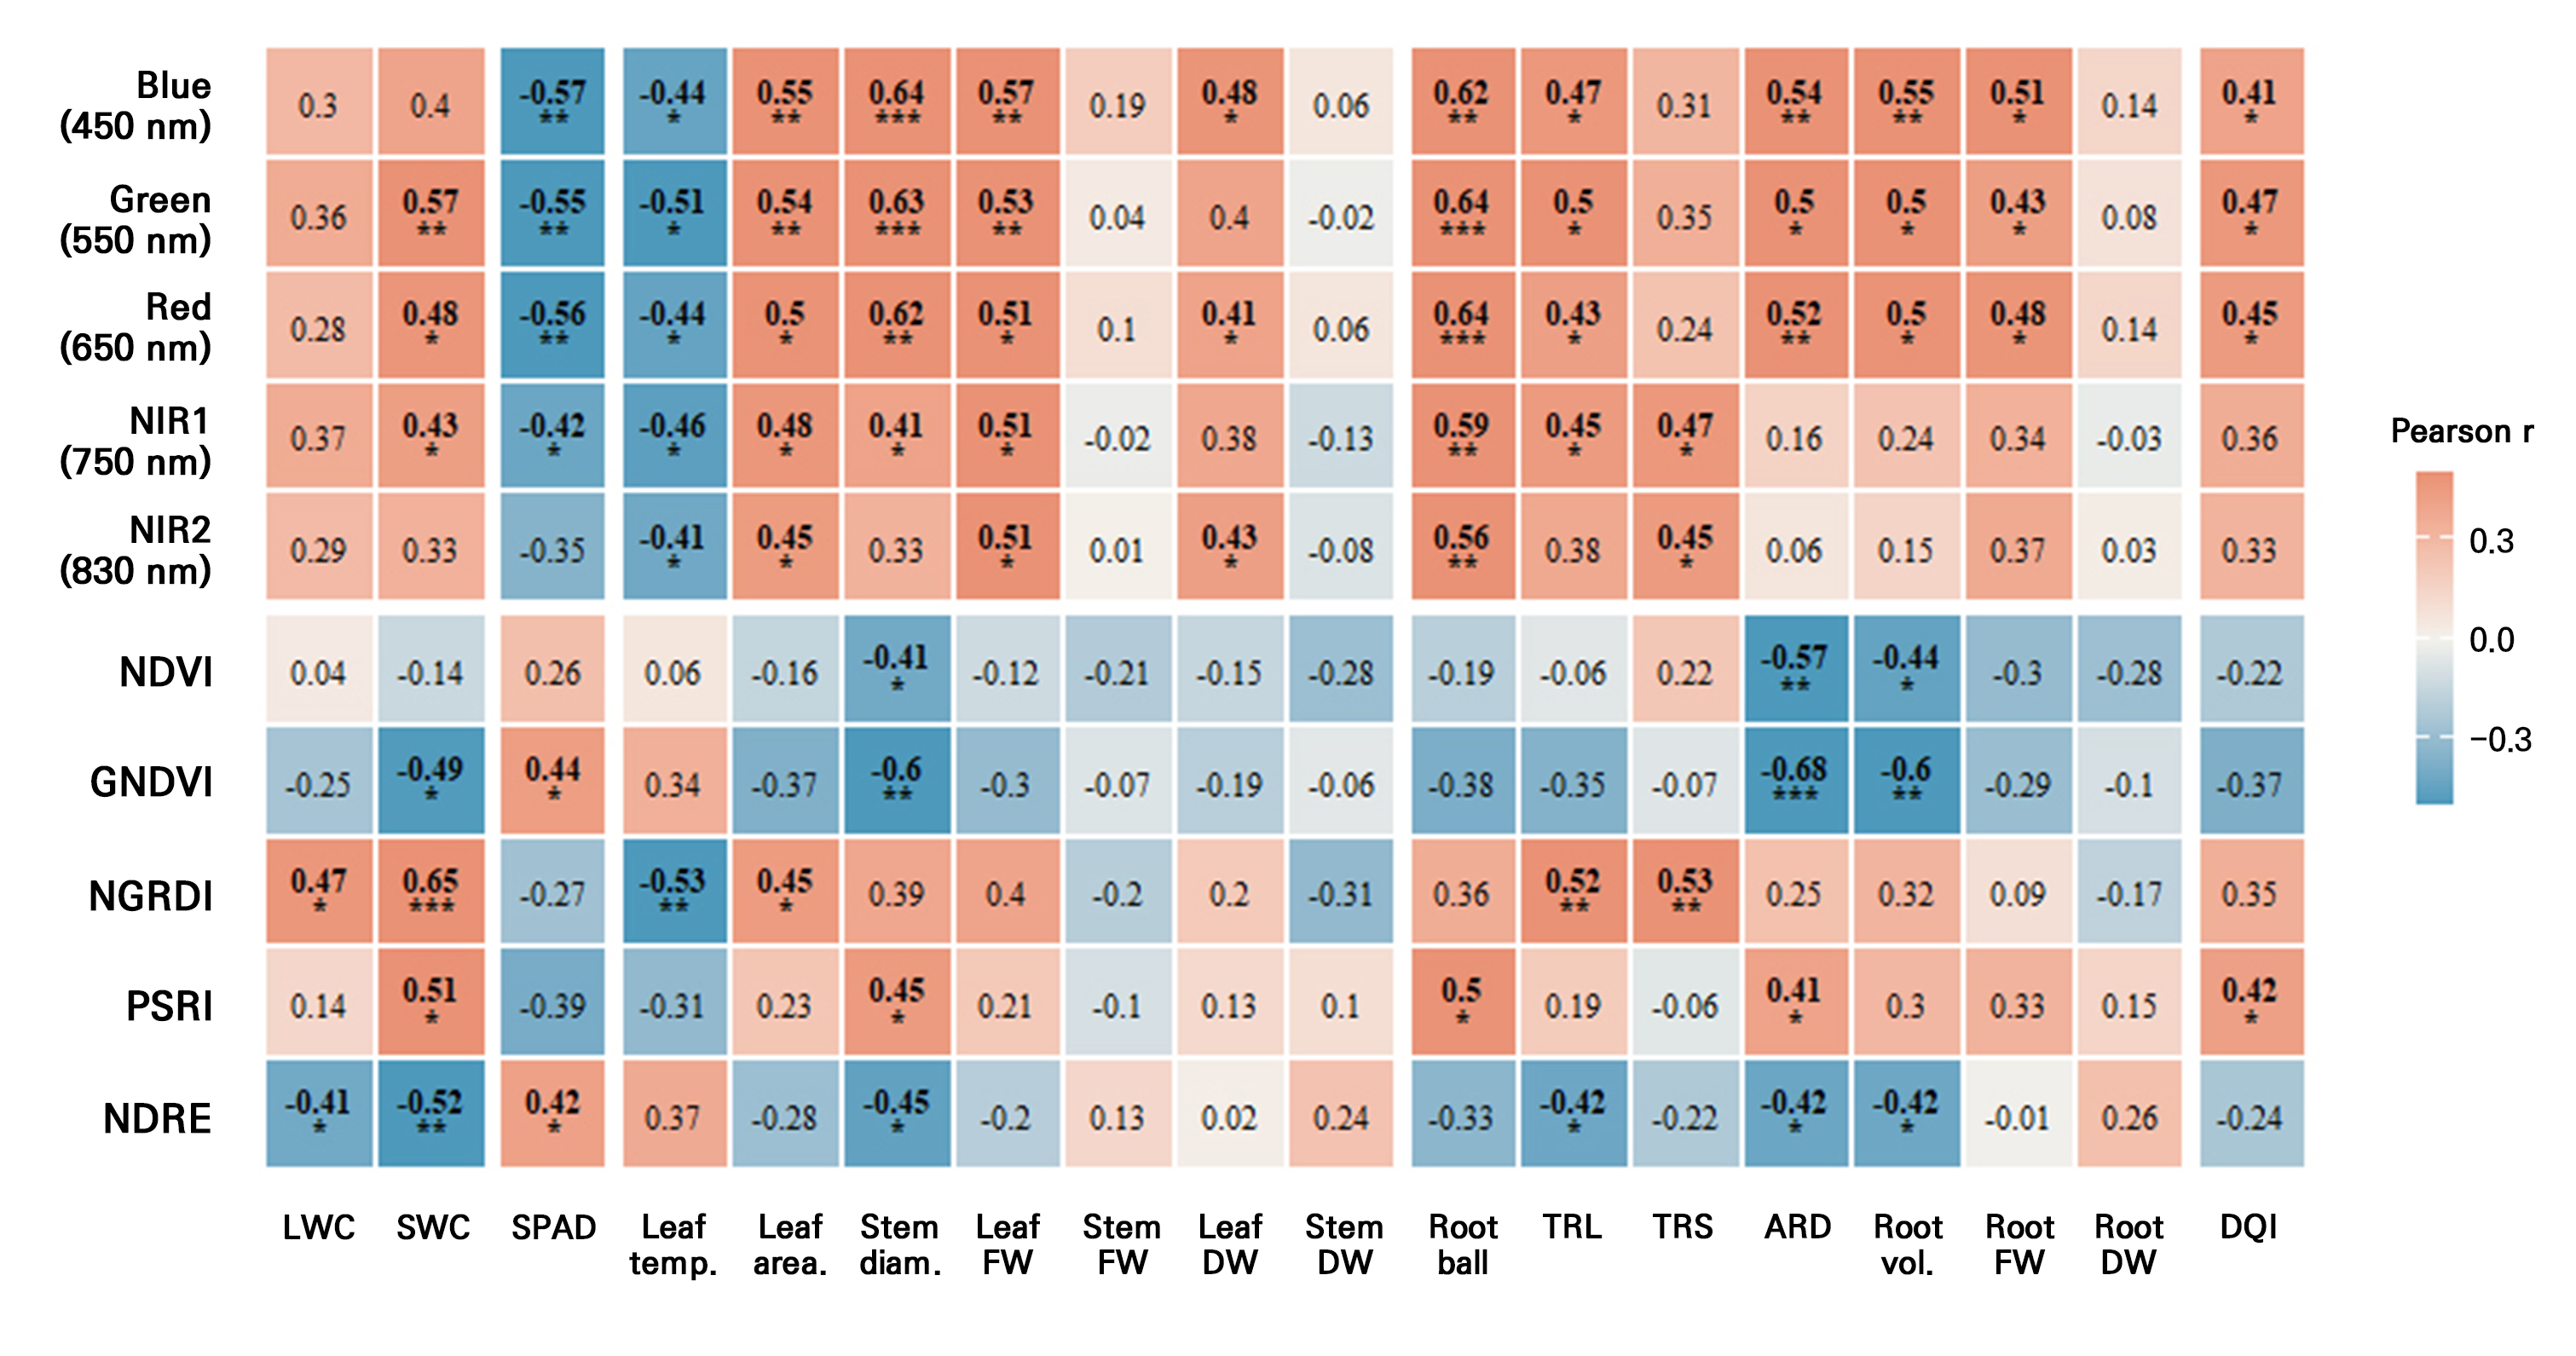
Fig. 7.
Pearson correlation heatmap between multispectral reflectance, vegetation indices, and growth and physiological parameters of Rehmannia glutinosa Libosch. plug seedlings on June 24, when drought stress responses were most pronounced (n = 24). Numbers indicate Pearson’s correlation coefficients. Color intensity indicates the strength of the correlation (red: positive, blue: negative). *, 33, and 33* indicate significance at p ≤ 0.05, 0.01, and 0.001, respectively. LWC, leaf water content; SWC, substrate water content; Leaf temp., leaf temperature; Stem diam., stem diameter; Leaf FW, leaf fresh weight; Stem FW, stem fresh weight; Leaf DW, leaf dry weight; Stem DW, stem dry weight; Root ball, root ball formation score; TRL, total root length; TRS, total root surface area; ARD, average root diameter; Root vol., root volume; Root FW, root fresh weight; Root DW, root dry weight; and DQI, Dickson quality index
수분 및 생리 지표 중 배지수분함량(substrate water content, SWC)은 NGRDI와 가장 강한 양의 상관(r = 0.65)을 나타냈으며, Green 반사율(r = 0.57) 및 PSRI(r = 0.51)와는 강한 양의 상관을, NDRE(r = ‒0.52)와는 강한 음의 상관을 보였다. 또한 엽온은 Green 반사율(r = ‒0.51) 및 NGRDI(r = ‒0.53)와 강한 음의 상관을 나타냈다. 이러한 결과는 NGRDI와 일부 가시광 기반 지표가 건조 스트레스에 따른 배지수분 감소 및 엽온 상승과 밀접하게 관련되었음을 보여준다. 특히 NGRDI가 SWC와 가장 강한 상관을 나타낸 것은 건조 3일차부터 처리 차이를 보인 NGRDI의 조기 반응성과 일치한다. 한편 SPAD는 Blue, Green 및 Red 반사율과 강한 음의 상관을 보였으나, 같은 시점에 총 엽록소 함량에서는 처리 간 유의한 차이가 나타나지 않았다(Fig. 2). 따라서 가시광 반사율과 SPAD의 관계는 엽록소 함량 자체뿐 아니라 건조에 따른 잎의 수분 상태 및 광학적 특성 변화가 함께 반영된 결과로 판단된다.
지상부 생육 지표에서는 경경, 엽면적 및 잎 생체중이 주로 Blue, Green 및 Red 반사율과 강한 양의 상관을 나타냈다. 이는 건조 스트레스가 심화된 시점에도 지상부 생육이 상대적으로 양호한 개체에서 가시광 반사율이 높게 유지되는 경향이 있었음을 의미한다. 반면 줄기 생체중과 줄기 건물중은 대부분의 다분광 지표와 뚜렷한 상관을 나타내지 않았다.
지하부 지표 중에서는 뿌리돌림(root ball formation, Root ball)이 Blue, Green, Red, NIR1 및 NIR2 전 파장대와 강한 양의 상관(r = 0.56–0.64)을 보여 가장 일관된 관계를 나타냈다. 또한 총 뿌리 길이(total root length, TRL)와 총 뿌리 표면적(total root surface area, TRS)은 NGRDI와 강한 양의 상관을 보였으며, 평균 뿌리 직경(average root diameter, ARD)과 뿌리 부피(root volume)는 GNDVI 또는 NDVI와 강한 음의 상관을 나타냈다. 이러한 지하부 지표와 다분광 지표 간의 상관은 건조 스트레스 조건에서 지하부 발달이 지상부의 수분 상태 및 생육 유지와 간접적으로 연관되고, 그 결과가 지상부의 반사 특성에 반영되었을 가능성을 시사한다. 묘소질 지수(Dickson quality index, DQI)는 강한 상관을 나타내지는 않았으나, Blue, Green 및 Red 반사율과 PSRI에서 중간 수준의 양의 상관을 보였다.
종합하면, 건조 4일차의 다분광 지표는 배지수분과 엽온뿐 아니라 잎의 생육 및 Root ball을 포함한 묘의 전반적인 생육 상태와도 관련성을 보였다. 특히 NGRDI는 수분 상태와, 가시광 반사율은 지상부 생육 및 Root ball과 비교적 일관된 관계를 나타내어, 건조 스트레스 조건에서 지황 플러그묘의 수분 상태와 묘소질을 비파괴적으로 평가할 가능성을 보여주었다. 다만 다분광 영상은 지상부의 광학적 특성을 측정하므로 지하부 형질과의 상관은 간접적인 관계로 해석해야 하며, 지하부 생육이나 묘소질을 정밀하게 예측하기 위해서는 추가적인 데이터 축적과 독립 자료를 이용한 모델 검증이 필요하다.
한편 전체 조사 시점의 자료를 통합한 Pearson 상관분석은 보충자료로 제시하였다(Supplementary Fig. S3). 통합 분석에서도 단일 파장 반사율과 일부 생육 지표 간의 양의 상관은 유사하게 나타났으나, 6월 24일에 확인된 식생지수와 수분 관련 지표 간의 일부 상관은 약화되었다. 이는 여러 조사 시점을 통합할 경우 Date와 Treatment 효과 및 생육 단계에 따른 변동이 함께 반영되어, 특정 스트레스 시점에 나타난 상관관계가 약화될 수 있음을 보여준다.
종합 고찰 및 한계점
본 연구는 지황 플러그묘의 건조 스트레스 반응을 생육, 수분 상태, 광합성 색소, 엽록소 형광 및 다분광 반사율을 통해 종합적으로 분석하였다. 다분광 영상 기반 지표에서는 엽록소 형광 지표보다 이른 건조 3일차에 NIR 반사율과 NGRDI에서 처리 간 차이가 나타났다. 특히 NGRDI는 초기 건조 스트레스에 민감하게 반응하였으며, PSRI는 회복관수 후 색소 상태 변화와 관련된 반응을 나타내어 지수별 활용 시점이 다를 가능성을 보여주었다. 이러한 결과는 다분광 영상이 광합성 기능의 뚜렷한 변화가 나타나기 전 초기 수분 스트레스에 따른 광학적 변화를 비파괴적으로 평가하는 도구로 활용될 가능성을 시사한다.
다만 본 연구는 단일 품종과 단일 재배 환경에서 수행된 단기 실험이며, 제한된 파장대의 상대 반사율을 기반으로 하였다. 또한 다분광 영상은 지상부의 광학적 정보를 측정하므로, 지하부 생육 및 묘소질 지표와의 관계는 직접적인 측정이 아닌 간접적인 연관으로 해석할 필요가 있다. 따라서 본 연구에서 확인된 다분광 지표의 진단 안정성과 적용 범위를 일반화하기 위해서는 다양한 품종과 재배 환경에서 추가 검증이 필요하다. 향후 다분광 정보와 생육·수분 및 지하부 형질을 통합한 예측 모델을 구축하고 독립된 자료를 이용해 검증함으로써, 지황 플러그묘의 건조 스트레스 진단과 묘소질 평가 정확도를 높일 수 있을 것으로 판단된다.
결 론
본 연구에서는 건조 스트레스에 따른 지황 플러그묘의 다분광 반사율 및 식생지수 변화를 생리·생육 반응과 연계하여 분석하였다. 건조 스트레스 초기에는 NIR 반사율과 NGRDI에서 처리 간 차이가 먼저 나타났으며, 스트레스가 심화됨에 따라 가시광 반사율과 GNDVI, NGRDI, PSRI 및 NDRE 등 일부 식생지수에서도 처리 차이가 나타났다. 회복관수 후에는 PSRI가 건조 스트레스 처리구에서 대조구보다 높게 나타나는 등 지수별로 반응 시점과 방향이 달랐다. 이러한 결과는 다분광 영상 기반 지표가 초기 탈수와 관련된 잎의 광학적 변화를 비파괴적으로 평가할 수 있으며, 지황 플러그묘의 건조 스트레스 조기 진단에 활용될 가능성을 보여준다.
Supplementary Material
Supplementary materials are available at Horticultural Science and Technology website (https://www.hst-j.org).
- HORT_20260033_Fig_S1.pdf
Supplementary Fig. S1. Root ball formation stages and root scanning images of Rehmannia glutinosa Libosch. plug seedlings: (A) Visual scoring of root ball formation on a three-point scale based on root–medium cohesion after seedling removal from the plug tray: Stage 1, poor formation with easy medium separation; Stage 2, partial formation with unstable cohesion; and Stage 3, well-developed formation with a stable cohesive root–medium unit. (B) Representative root scanning images of control and drought-stressed seedlings captured on June 24, before rewatering.
- HORT_20260033_Fig_S2.pdf
Supplementary Fig. S2. Representative images of the indoor multispectral imaging system and individual seedling ROI (region of interest) extraction procedure: (A) Configuration of the indoor multispectral imaging system used in this study. Although a plug tray is shown in the representative setup image, the multispectral images used for the analysis were acquired from individual seedlings. (B) White-reference- normalized reflectance image of an individual seedling, (C) NDVI-based segmentation using an NDVI threshold of 0.33, (D) ROI overlay showing the extracted plant pixels on the normalized reflectance image, and (E) extracted seedling ROI used for reflectance and vegetation index calculations. Pixels with NDVI values lower than 0.33 were regarded as background and were excluded from the analysis.
- HORT_20260033_Fig_S3.pdf
Supplementary Fig. S3. Pearson correlation coefficients between multispectral reflectance variables and seedling quality indicators in Rehmannia glutinosa Libosch. plug seedlings using pooled data from all sampling dates (n = 84). Color intensity indicates the strength of the correlation (red: positive, blue: negative). *, **, and *** indicate significance at p < or = 0.05, 0.01, and 0.001, respectively. LWC, leaf water content; SWC, substrate water content; Leaf temp., leaf temperature; Stem diam., stem diameter; Leaf FW, leaf fresh weight; Stem FW, stem fresh weight; Leaf DW, leaf dry weight; Stem DW, stem dry weight; Root ball, root ball formation score; TRL, total root length; TRS, total root surface area; ARD, average root diameter; Root vol., root volume; Root FW, root fresh weight; Root DW, root dry weight; and DQI, Dickson quality index.
