

서 언
재료 및 방법
공시 재료 및 재배 환경
처리
조사항목
통계분석
결과 및 고찰
재배 환경 및 아쿠아포닉스 사육수의 변화
광합성 특성
SPAD 및 엽록소 형광 특성
생육특성
개화특성
서 언
아쿠아포닉스(Aquaponics)는 어류 양식의 사육수를 식물 재배에 활용하여 수질 정화와 작물 생산을 동시에 만족하는 폐쇄적 자원 순환형 농업 시스템이다. 최근 엽채류 중심의 생산에서 관상식물 및 고부가가치 작물로 적용 범위가 확대되면서, 아쿠아포닉스 환경에서의 작물 생리 반응과 생육 안정성에 관한 체계적 연구가 요구되고 있다. 특히 아쿠아포닉스 시스템에서는 사육수의 양분 조성과 농도의 직접 조절이 제한적이므로, 사육수의 전기전도도(electrical conductivity, EC)가 식물 생장과 생리 대사에 미치는 영향을 규명하는 것이 중요할 것이다.
EC는 식물이 이용 가능한 무기 양분의 총량을 반영함으로써, 수경재배 및 아쿠아포닉스 환경에서 생육, 광합성, 생식 생장에 직접적 영향을 미친다. 아쿠아포닉스 시스템에서는 화학비료를 직접 조절하는 수경재배와 달리, 어류 사료 투입량과 질산화 과정을 통해 간접적으로 양분이 공급된다. 이로 인해 사육수의 EC는 실제 생산 현장에서 관리 가능한 주요 변수로 작용한다. 일반적으로 EC가 낮을 경우 양분 결핍, 과도할 경우 삼투 스트레스가 발생할 수 있으며, 이러한 영향은 생식생장 단계에서 더욱 민감하게 나타나는 것으로 보고되었다. 그러나 실제 아쿠아포닉스 시스템에서는 EC가 비교적 완만한 범위 내에서 변동하며, 이 범위 내에서 생리적 반응과 개화 안정성이 어떻게 달라지는지는 연구가 미흡하다.
칼랑코에(Kalanchoe blossfeldiana)는 CAM(Crassulacean Acid Metabolism) 대사 경로를 가진 대표적인 다육성 관상식물로서, 수분 이용 효율이 높고 건조 환경 적응력이 우수하여 전 세계적으로 상업적 가치가 높은 분화용 화훼 작물이다. 특히 장기간 개화 특성, 다양한 화색, 저장 및 유통 안정성으로 인해 유럽과 아시아 시장에서 안정적인 수요를 유지하고 있으며, 환경 스트레스에 대한 내성이 비교적 높아 시설원예에서 재배 적응성이 우수한 작물로 평가된다(Males 2017). 아쿠아포닉스 시스템은 지속적인 수분 및 무기양분 공급이 이루어지는 동시에, 비교적 높은 상대습도 조건이 형성되는 경향이 있어 토경 또는 관행 수경 환경과는 다른 기후 조건을 제공한다(Love et al. 2015). CAM 식물은 야간에 기공을 개방하여 CO2를 흡수하고 이를 말산(malate) 형태로 액포에 저장한 뒤, 주간에는 기공을 폐쇄한 상태에서 저장된 말산을 탈탄산하여 광합성을 수행함으로써 증산을 최소화하는 고효율 수분 이용 기작을 갖는다. 그러나 CAM 식물은 환경 조건에 따라 CAM 대사와 C3 광합성 사이를 전환하는 대사적 가소성(metabolic flexibility)을 지니며(Ota 1988; Males and Griffiths 2017), 수분과 무기 양분이 충분히 공급되는 조건에서는 주간 기공 개방이 증가하고 C3 형 탄소 동화 비율이 높아지는 CAM cycling 또는 facultative CAM 양상이 나타날 수 있다. 이러한 대사적 전환 가능성은 수분과 양분이 지속적으로 공급되는 아쿠아포닉스 환경에서 CAM 식물의 생리 반응이 건조 조건과 상이하게 나타날 수 있음을 시사한다.
한편, 아쿠아포닉스 시스템에서는 수조 수면의 증발과 식물의 증산이 복합적으로 작용하여 재배 공간 내 상대습도가 높아지고, 이에 따라 수증기압차(Vapor Pressure Deficit, VPD)가 낮게 형성되는 경향이 있다. VPD는 기공 전도도, 증산 속도, 엽내 CO2 농도(Cᵢ)를 통해 광합성 속도 및 탄소 동화에 직접적으로 관여하는 핵심 환경 요인이다(Grossiord et al. 2020). 특히 CAM 식물에서 야간 VPD는 기공 개방 정도와 CO2 흡수량을 결정하는 중요한 변수로, 낮은 VPD 조건은 야간 기공 개방을 유지시켜 말산 축적을 촉진하는 반면, 높은 VPD 조건은 기공 폐쇄를 유도하여 야간 탄소 동화를 제한한다. 다만, 수분 공급이 원활한 조건에서는 VPD 상승에 따른 기공 폐쇄 반응이 완화되거나 비선형적으로 나타날 수 있어(Ding et al. 2022), 동일한 VPD 수준에서도 식물 수분 상태에 따라 생리 반응이 상이하게 나타날 수 있다. 또한, VPD 변화에 따른 탄소 동화량의 변동은 생식 생장 단계에서 동화산물의 source–sink 자원 분배에 영향을 미쳐 화기 형성과 개화 반응과 같은 생식 특성을 변화시킨다(Wardlaw 1990; Marcelis 1996; Smith and Stitt 2007).
식물의 광합성 기능을 평가하기 위해 엽록소 형광 분석은 비파괴적이면서도 민감한 방법으로 널리 활용된다. 최대 광화학 효율(Fv/Fm)은 광계 II(PSII)의 구조적 안정성을 나타내는 지표로서 비스트레스 조건에서 통상 0.80 전후의 값을 나타낸다(Maxwell and Johnson 2000). 그러나 Fv/Fm은 상대적으로 안정적인 지표이므로 경미한 환경 스트레스에는 큰 변화를 보이지 않는 반면, PSII의 전자 전달 효율과 반응 중심 활성도를 종합적으로 반영하는 성능 지수(PI_ABS)는 스트레스 반응을 보다 민감하게 검출하는 것으로 알려져 있다(Stirbet et al. 2018). 또한 반응중심당 에너지 소산 비율(DIo/RC)은 광보호 기작인 비광화학적 소산(NPQ)이 활성화될 때 증가한다고 알려져 있다. 이때 과잉 에너지는 화학적 이용보다는 열로 소산됨으로써 PSII 손상을 억제하게 되며, 환경 스트레스와 양분 불균형 상태에서 증가하는 경향을 나타낸다(Singh et al. 2022).
아쿠아포닉스 환경에서 사육수의 양분(EC) 요인뿐만 아니라 VPD를 포함한 미기상 환경 요인을 통합적으로 고려할 필요가 있다. 따라서 본 연구는 서로 다른 습도 조건(VPD 수준)하에 아쿠아포닉스 시스템에서 관리 가능한 EC 범위(0.5, 1.0, 1.5dS·m-1)가 칼랑코에의 생리적 반응, 생육 및 개화 특성에 미치는 영향을 규명하여 아쿠아포닉스 환경에서 CAM 관상식물의 품질 확보를 위한 기초 자료로서 이용하고자 수행하였다.
재료 및 방법
공시 재료 및 재배 환경
본 실험은 강원도 춘천시 강원대학교 내 온·습도 및 광 환경 조절이 가능한 실내 재배실(Treatment, 60.8m3)과 환경이 제어되지 않는 건물 내 복도(Control)에서 수행하였다(Table 1). 실내 재배실의 온도는 22°C, 습도는 60%로 설정하였다. 공시재료인 칼랑코에(Kalanchoe blossfeldiana)는 삽목 후 41일 된 식물체(초장 4.9–5.1cm)를 사용하였으며, 네트포트에 이식하여 7일간 순화 후 정식하였다. 광원은 백색 LED(COB, L-PEC, Korea)를 이용하여 LED 등 아래 35cm 지점의 광도는 100µmol·m-2·s-1, 일장은 16/8시간(주/야)으로 설정하였다. 처리 후 54일째부터 80일까지는(4주) 개화 유도를 위해 8/16시간(주/야)으로 단일처리를 실시하였다. 재배 환경은 데이터 로거(WatchDog 1000, Spectrum Technologies Inc., USA)를 이용하여 실내 재배실과 건물 내 복도에 식물체 높이에 설치하여 30분간격으로 온도, 상대습도(relative humidity, RH)와 이슬점(DEW)을 측정하였다. 수집된 데이터를 이용하여 월별 평균과 표준편차를 계산하였고, VPD는 다음 식 (1), (2), (3)을 이용하여 계산하였다(Allen et al. 1998; Table 1).
•: 공기 온도에서의 포화 수증기압(kPa)
•: 이슬점을 이용한 실제 수증기압(kPa)
Table 1.
Monthly mean temperature, relative humidity, and vapor pressure deficit (VPD) in the controlled growth room and uncontrolled corridor during the experimental period
| Room typez | Monthy | Temp. (°C) | RH (%) | VPD (kPa)x |
| Growth room | Oct. | 23.6 ± 0.65w | 68.3 ± 3.69 | 0.92 ± 0.09 |
| Nov. | 23.5 ± 0.87 | 52.7 ± 10.01 | 1.36 ± 0.27 | |
| Dec. | 22.2 ± 1.38 | 54.3 ± 7.35 | 1.22 ± 0.22 | |
| Jan. | 21.1 ± 1.60 | 66.8 ± 4.33 | 0.84 ± 0.18 | |
| Feb. | 22.6 ± 1.58 | 58.0 ± 5.15 | 1.15 ± 0.22 | |
| Mar. | 22.6 ± 1.55 | 46.0 ± 5.96 | 1.50 ± 0.26 | |
| Avg. | 22.4 | 57.7 | 1.18 | |
| Corridor | Oct. | 22.8 ± 0.66 | 47.5 ± 1.10 | 1.46 ± 0.06 |
| Nov. | 24.2 ± 1.63 | 24.1 ± 9.63 | 2.30 ± 0.38 | |
| Dec. | 24.4 ± 2.21 | 29.1 ± 16.41 | 2.22 ± 0.67 | |
| Jan. | 21.4 ± 1.70 | 58.2 ± 17.41 | 1.09 ± 0.53 | |
| Feb. | 21.6 ± 2.00 | 28.9 ± 5.49 | 1.85 ± 0.29 | |
| Mar. | 22.5 ± 2.04 | 22.1 ± 3.64 | 2.14 ± 0.28 | |
| Avg. | 22.8 | 32.7 | 1.98 |
재배 방식은 상하단이 분리되어 있는 실내용 수경재배기(KSP-1000, Gafatech Co. Ltd., Korea, 46×32×24cm, 12L)를 활용한 순환 담액 방식으로 설치하였다. 하단의 사육수는 1일 9회(03:30, 07:30, 09:30, 11:30, 13:30, 15:30, 17:30, 19:30, 23:30) 회당 15분간 순환되도록 설정하였다. 순환이 종료되면 상단 재배조의 사육수는 파이프에 가로 3cm의 홈을 파 30분동안 천천히 배액되도록 하였다. 사육수의 pH를 높이기 위해 1N KOH를 이용하여, pH 5.5 이하일때 투여하였다. 증발된 물은 1주일에 한번, 24시간이상 받아둔 수돗물을 증발된 양만큼 보충하였다. 상단 재배조 식물체는 포맥스로 재단된 재배판(47cm × 34cm × 5T, 포트 구멍 Ø6.5cm)을 이용하여 포기 간격 15cm, 주간 간격 16cm로 거치하였다.
처리
본 실험은 사육수의 전기전도도(EC) 3수준(0.5, 1.0, 1.5dS·m-1)과 재배 환경(환경 제어 재배실 및 비제어 복도)을 비교하기 위해 수행되었다. EC 처리는 환경이 제어되는 실내 재배실에서 0.5, 1.0, 1.5dS·m-1의 세 수준으로 설정하였으며, 비제어 환경(Cont, 대조구)에서는 EC 1.0dS·m-1 수준을 유지하여 동일 EC 조건에서 환경 효과를 비교하였다. 즉, 본 실험은 재배실 내 EC 3수준 간 비교와 함께, EC 1.0dS·m-1 조건에서 환경(제어 vs 비제어) 간 차이를 분석하는 구조로 설계되었다. 사육수의 농도를 일정하게 유지하기 위해 EC 측정값이 설정 수준보다 +0.2dS·m-1 일 때는 사료 공급을 중지하였고, ‒0.2dS·m-1 일 때는 1회 혹은 2회 3–5시 사이에 추가로 공급하였다. 각 처리구는 식물 재배조와 수조를 하나의 실험 단위(experimental unit)로 하여 2반복의 완전임의배치법으로 배치하였다. 반복당 식물체는 6개체씩 정식하였고, 금붕어(Carassius auratus)는 3마리씩(88.3 ± 3.34g) 수조에 입어하였다. 사료는 1일 1회 0.4g씩 오전 중에 급이 하였고, 사료 성분(그로비타, 대한사료㈜, 대한민국)은 조단백(50.0%), 조지방(5.0%), 조섬유(4.0%), 조회분(12.0%), 인(1.80%), 칼슘(1.0%)으로 구성되었다.
조사항목
조사항목은 사육수 변화, 생육, 생리반응을 조사하였다. 사육수 특성을 조사하기 위해 pH와 EC는 주 6회 다항목 측정기(HI9814, HANNA, USA)를 사용하여 오전 9시에 기포 발생 구역을 피하여 측정하였다.
생육 특성은 농업과학기술 연구조사분석기준에 준하여 처리 후 0, 28, 54, 80, 120, 140일째 생장점 아래 3번째 엽의 SPAD(SPAD-502Plus, KONICA MINOLTA INC., Japan)를 측정하였고, 처리 후 140일의 초장, 초폭, 포엽(bract) 아래 다섯번째 엽의 엽맥과 가장자리의 중간부위의 경도(FR-5120, Lutron, Taiwan, Ø3mm), 줄기굵기(CD-AX/C, Mitutoyo, JAPAN)를 측정하였다.
개화 특성은 처리 140일째 첫 화경의 화고와 화폭을 측정하였고, 공시 개체별 화경수(number of peduncle), 모든 개체의 화경수는 상이하여 각 개체의 첫번째 화경에서 네번째 화경의 소화수(No. of floret, 미개화수+누적 개화수), 미개화수(No. of unbloomed, 꽃봉오리 상태의 꽃 수), 누적 개화수(Cumulative No. of blooms, 꽃잎이 전개되거나 개화가 종료된 꽃 수)를 조사하여 누적 개화율[Cumulative flowering rate, 누적 개화수/소화수×100]을 계산하였다.
광합성 특성은 휴대용 광합성 측정기기(LI-6800, Li-COR, Lincoln, NE, USA)를 이용하여 28, 54, 80일째 생장점 아래 3번째 잎을 CAM식물의 Phase IV 단계인 15시부터 18시까지 측정하였으며, 측정 시 chamber 내의 조건은 인공광원(red and blue light emitting diodes, LED)을 이용한 광량 100µmol·m-2·s-1 로 15분간 광 적응시간 대기 후 측정하였고, 공기 흐름 600µmol·m-2·s-1, CO2농도 400µmol·mol-1, 온도 25°C, RH 60%로 고정하였다. 측정항목은 광합성(Photosynthesis, Pn), 기공전도도(Stomatal conductance, Cond), 증산률(Transpiration rate, Tr)을 측정하였다.
생리적 특성은 28, 80, 140일째 엽록소 형광 측정기(FP110/D, Photon System Instruments, Czech Republic)를 사용하여 생장점 아래 3번째 잎의 가장자리에 Leaf clip을 물려 15분이상 암 적응 후 5초간 청색LED(470nm)를 조사하여 측정된 결과를 비교 분석하였다.
통계분석
통계분석은 SAS(Statistical Analysis System, Version 9.4, SAS Institute Inc.) 통계프로그램을 이용하여 분산분석(ANOVA)을 실시하였으며, 처리 평균 간의 유의성은 Duncan’s multiple range test(DMRT)를 통해 5% 유의수준에서 검정하였다.
결과 및 고찰
재배 환경 및 아쿠아포닉스 사육수의 변화
실험기간 동안 환경이 조절되는 실내 재배실과 조절되지 않는 복도(대조구)의 환경을 분석한 결과 두 환경의 평균 기온은 재배실 22.4°C와 대조구 22.8°C로 유사하게 유지하였다(Table 1). 반면, 상대습도(RH)는 재배실 57.7%에 비해 대조구에서 32.7%로 낮아 건조한 환경으로 나타났다. 이러한 상대습도 차이는 VPD의 차이로, 대조구에서 실험 기간 평균 VPD는 1.98kPa로 재배실(1.18kPa)보다 0.8kPa 높게 나타났다. 특히, 11월, 12월과 3월에는 2.0kPa 이상으로 높은 VPD가 관찰되었지만, 재배실에서는 11월부터 3월까지 1.5kPa 이하로 유지하였다. 이와 같이 두 재배 환경은 온도는 유사하였으나 상대습도와 이에 따른 VPD에서 차이를 나타냈지만, 두 환경은 재배 장소가 서로 달라 광환경, 공기 유동과 기타 미세환경의 차이가 함께 존재할 가능성이 있을 것으로 사료된다.
140일간의 실험 기간 동안 아쿠아포닉스 사육수의 pH는 모든 처리구에서 처리 후 19일째(19 DAT)까지는 감소하였지만 이후 실험 종료일까지 pH 5.0–6.6 수준으로 유지하였고, EC 1.0이상 처리구에서 EC 0.5보다 증감의 변동폭이 크게 나타났다(Fig. 1A). 실험 초기 pH가 급격하게 감소한 것은 하이드로볼 배지의 넓은 표면적이 질산화 미생물의 활성을 촉진하여 안정적인 질소 순환을 유도했기 때문으로 판단되며(Lee et al. 2020), 이후 기간의 pH 증감은 식물의 양분 흡수에 따른 이온 흡수 효율에 따른 것으로 보인다.
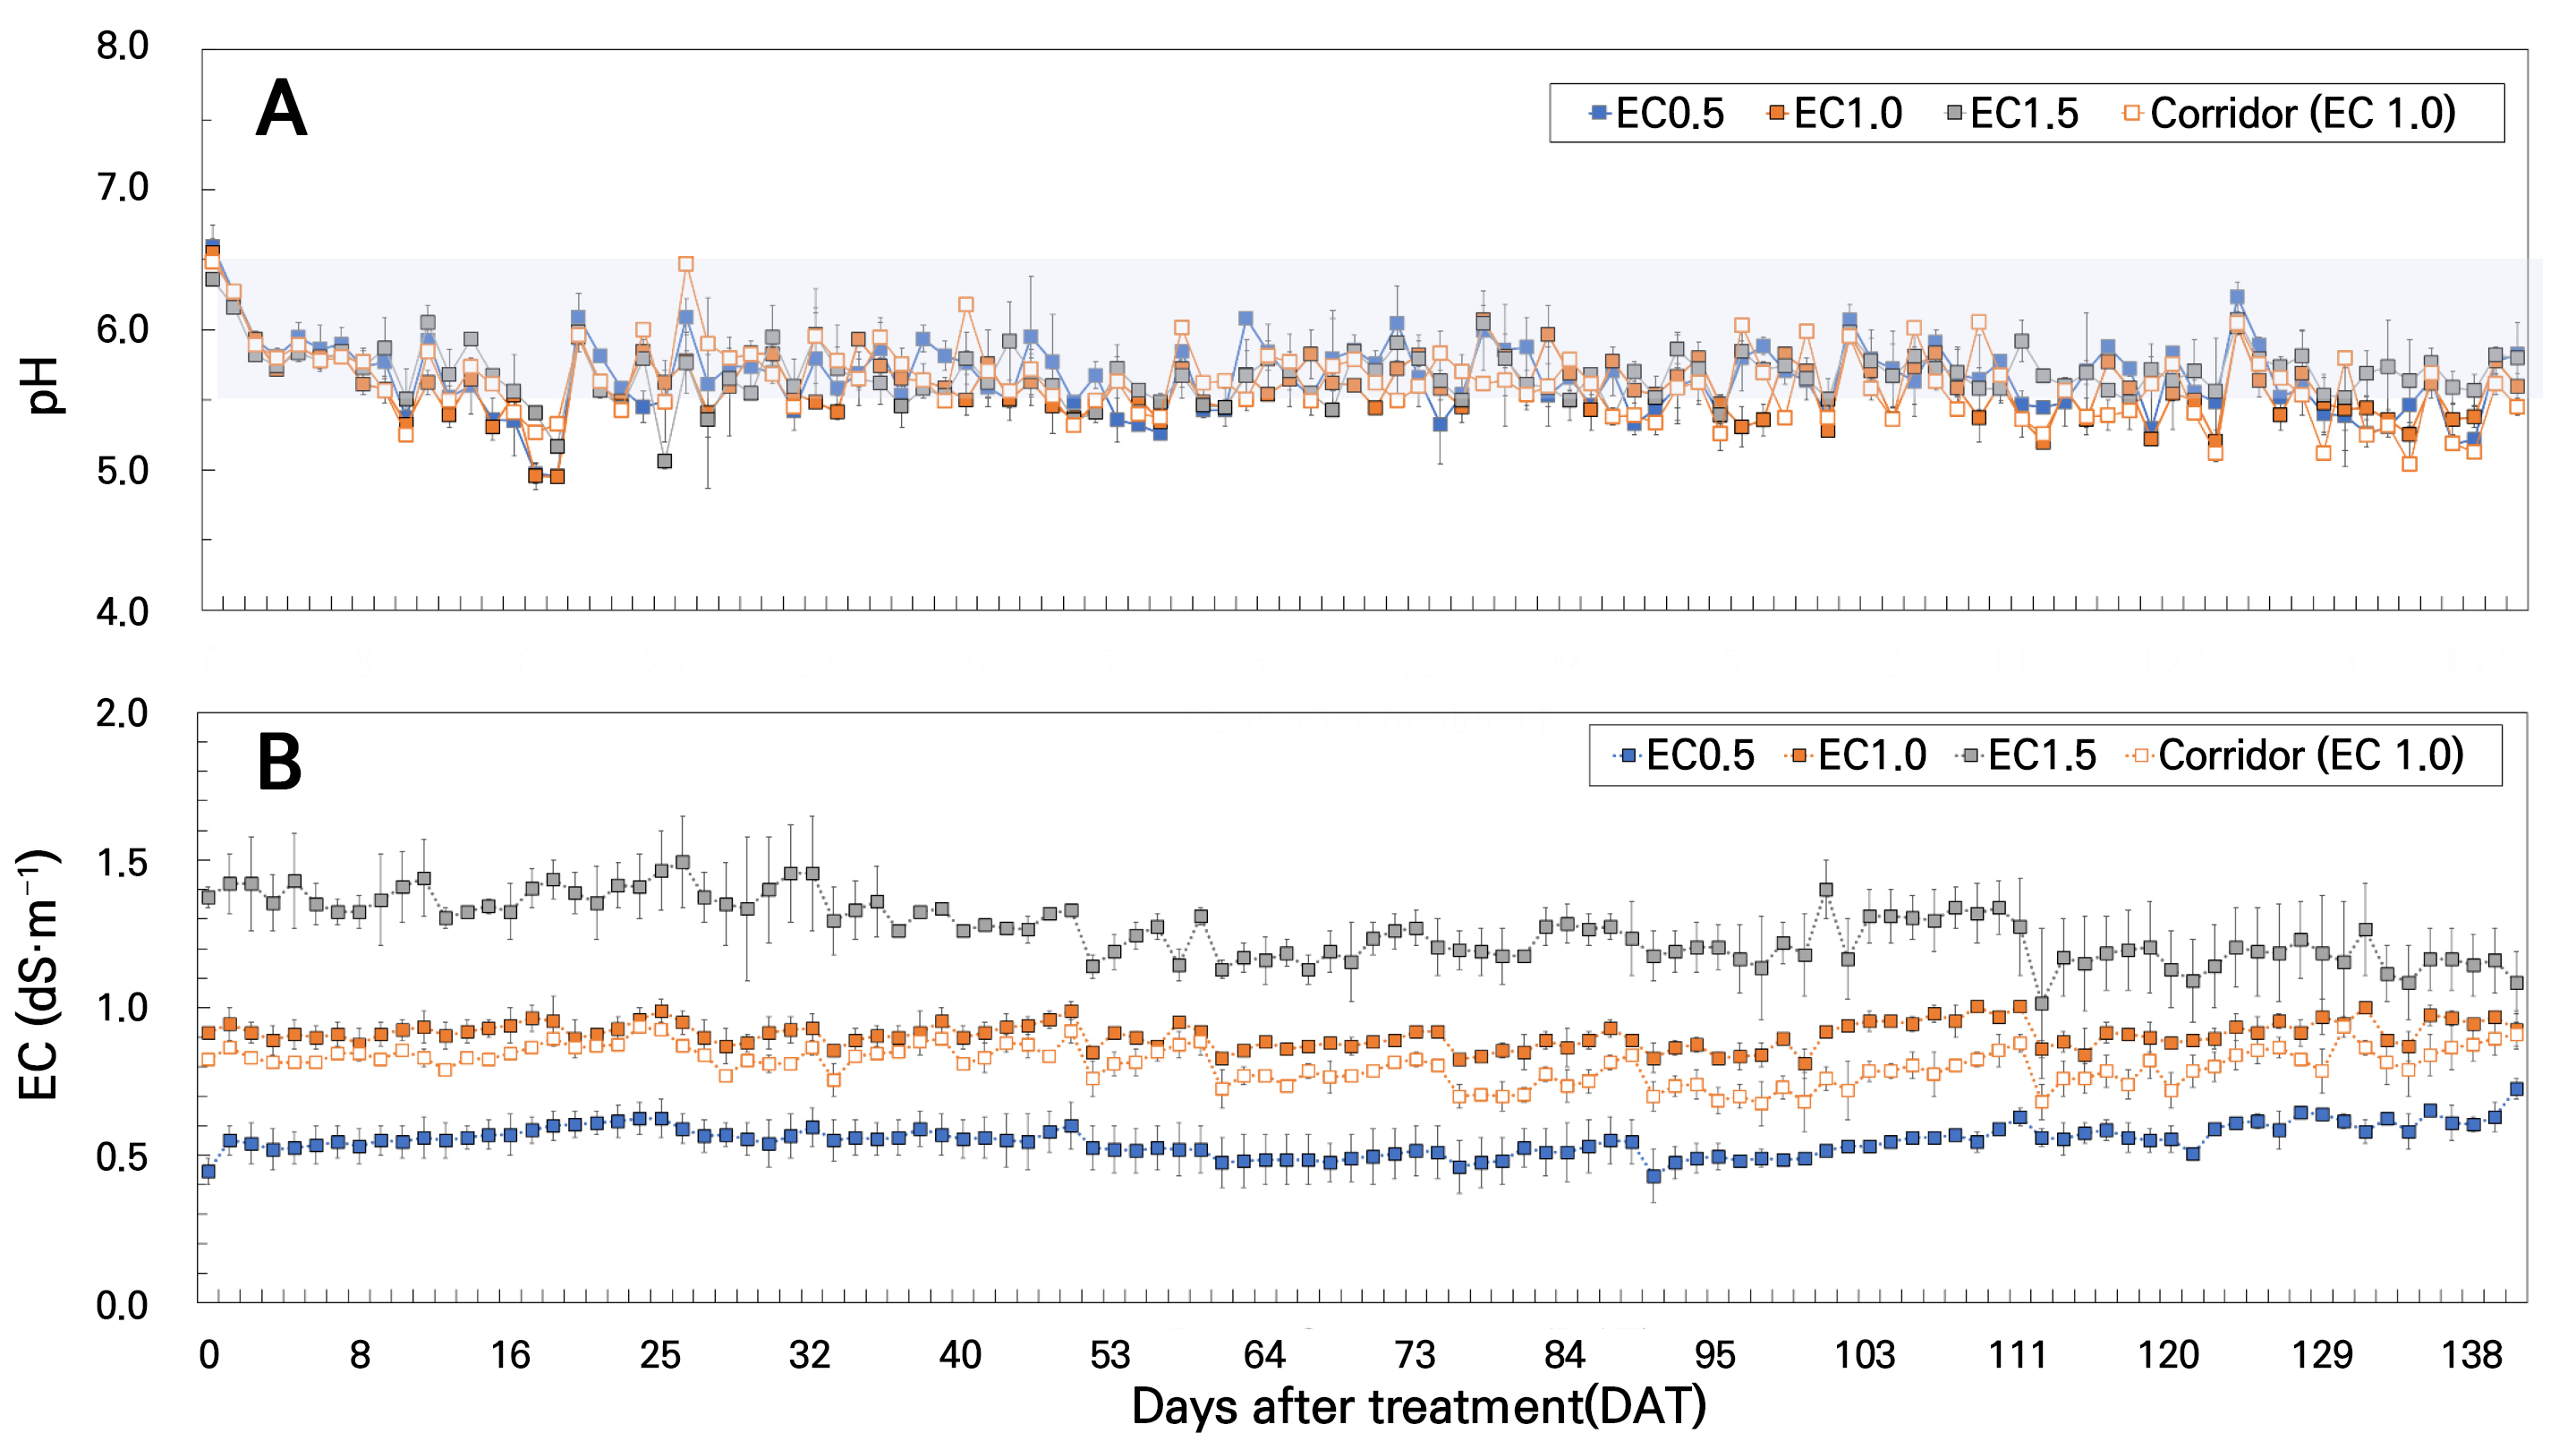
전기전도도(EC) 변화는 설정된 처리 수준(0.5, 1.0, 1.5dS·m-1)에 따라 일정하게 유지되며 양분의 집적은 관찰되지 않았다(Fig. 1B). 실험 전 기간 동안 EC 1.5 처리구는 1.0–1.5dS·m-1 였고, 재배실과 대조구에서의 EC 1.0 처리구는 0.8–1.0dS·m-1 수준이었으며, EC 0.5 처리구는 0.4–0.7dS·m-1범위로 측정되었다. 이는 아쿠아포닉스 시스템 내 질산화 과정과 식물의 양분 흡수가 균형을 이루었음을 보여주는 결과로 선행 연구와 일치한다(Lee et al. 2022; Khandelwal et al. 2024).
광합성 특성
사육수의 EC 수준과 재배 환경에 따른 칼랑코에의 광합성 특성을 28, 54, 80 DAT 광합성률(Photosynthesis, Pn), 기공전도도(Stomatal conductance, Cond), 증산률(Transpiration rate, Tr)은 실험 경과에 따라 EC 조건보다는 VPD 조건에 따른 차이가 뚜렷하게 나타났다(Fig. 2). Pn은 대조구에서 재배실에 비해 상대적으로 낮은 습도 조건에도 불구하고 더 높은 경향을 보였다(Fig. 2A). 수경재배에서 EC농도의 증가는 양분 가용성을 높여 광합성을 촉진하는데, 28 DAT Pn은 재배실 내 EC 처리구(0.5, 1.0, 1.5dS·m-1)에서 2.00–2.17µmol·m-2·s-1 범위로 유사하게 나타났다. 반면 동일 EC 1.0dS·m-1 조건의 대조구는 2.78µmol·m-2·s-1 로 나타나, 재배실 EC 1.0 처리보다 38.8% 높은 값을 보였다. 이 시기 대조구의 평균 VPD는 2.30kPa 로 높게 형성된 11월(Table 1)로, 높은 VPD는 기공 폐쇄를 유도하여 광합성을 제한하는 것으로 알려져 있다(Grossiord et al. 2020). 하지만 충분한 수분 공급 조건에서는 높은 VPD가 반드시 탄소 동화 저하로 이어지지 않을 수 있다는 선행보고와 일치한다(Ding et al. 2022). 특히 CAM 식물은 건조 환경에 적응된 기공 조절 전략을 가지며, 수분과 양분이 충분할 경우 잠재적 광합성 능력을 유지하거나 발현할 수 있는 것으로 보고되었다(An et al. 2008; Males and Griffiths 2017). 54 DAT(12월, 대조구 VPD 2.22kPa)에서는 모든 처리구에서 Pn이 감소하였으며, 특히 EC 1.0처리구에서 재배실과 대조구 모두 28 DAT의 3/4 수준으로 나타났다. 이 시기는 재배실 VPD도 1.22kPa로 상승한 시점으로, VPD 상승이 두 환경 모두에서 일시적인 탄소 동화 저하에 기여했을 것으로 판단된다. 이후 1월(대조구 VPD 1.09kPa, 재배실 0.84kPa)에 해당하는 80 DAT에서 EC 0.5는 1.47µmol·m-2·s-1 로 28 DAT부터 지속적으로 감소한 반면, EC 1.0처리구와 EC 1.5처리구는 각각 1.86µmol·m-2·s-1 과 2.27µmol·m-2·s-1 로 회복되었다. 대조구는 2.66µmol·m-2·s-1으로 가장 높았으며, 이는 EC 1.0 처리구 대비 약 43%, EC 0.5 처리구 대비 약 83% 높은 수준을 보였다. Pn은 대조구에서 더 높은 경향을 보였으며, 이는 두 환경 간 VPD를 포함한 재배 환경 차이와 관련되었을 가능성이 있다.
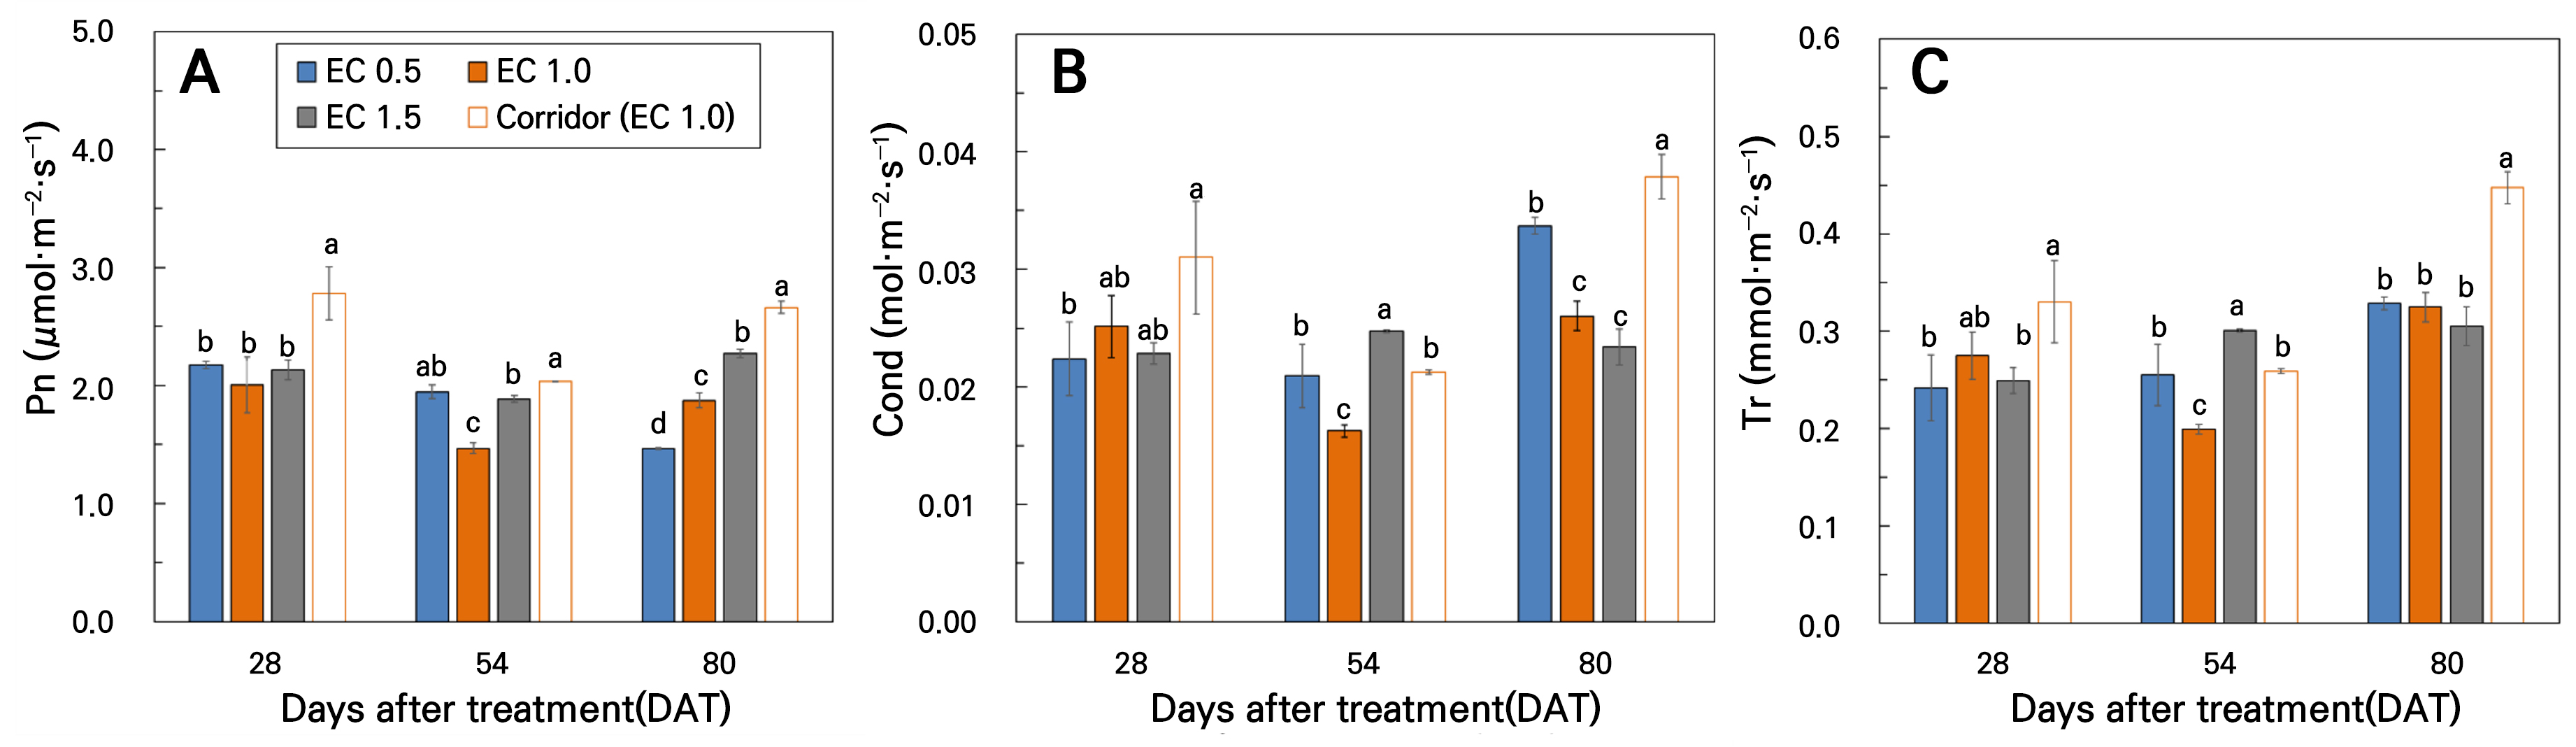
Fig. 2.
Effects of EC levels and the vapor pressure deficit (VPD) on the photosynthetic characteristics of Kalanchoe blossfeldiana in an aquaponic system at 28, 54 and 80 days after treatment. Pn, Photosynthesis (A); Cond, Stomatal conductance (B); Tr, Transpiration rate (C). Vertical bars indicate the standard deviation of means (n=3). Different letters within the same DAT indicate significant differences among the EC treatments according to Duncan’s multiple range test at p < 0.05.
기공전도도(Cond, Fig. 2B)와 증산률(Tr, Fig. 2C) 역시 재배 환경에 따라 유사한 경향을 보였다. 80 DAT에서 대조구의 Cond는 0.038mol·m-2·s-1로 가장 높았으며, 재배실 EC 처리구(0.023–0.034mol·m-2·s-1)보다 유의적으로 높았다. 동일 시기 Tr은 대조구에서 0.45mmol·m-2·s-1로 54 DAT 대비 1.7배 증가하였는데, 이는 1월의 낮아진 VPD와 함께 재배 환경 변화가 기공 개방 및 CO2 확산에 영향을 미쳤을 가능성이 있다. 광합성 세 지표(Pn, Cond, Tr)는 대조구에서 VPD 변동에 따른 기공 조절을 통해 수분 손실과 CO2 확산 간의 균형이 유지되었음을 보여주며, 이로 인해 높은 Pn 유지로 이어진 것으로 판단된다.
SPAD 및 엽록소 형광 특성
아쿠아포닉스에서 EC수준 처리일, 14, 28, 54, 80, 120과 140 DAT 칼랑코에 잎의 SPAD 값을 측정한 결과 EC 수준에 따라서는 유사하였으나, 재배 환경과 재배 기간에 따른 변화가 뚜렷하게 나타났다(Fig. 3A). 생식 생장 전환기인 28–80 DAT(11–1월) 동안 대조구는 49.1–49.4값으로 유지되며, 재배실 EC 처리구 53.5–56.7 수준보다 낮은 수준을 보였다. 이 시기는 대조구 VPD가 2.30kPa(11월)에서 1.09kPa(1월)으로 크게 변동하는 구간으로, 높은 VPD 조건에서 증산 부하가 증가함에 따라 영양 생장에서 생식 생장으로의 전환 과정에서 동화산물 분배 구조가 변화했을 가능성이 있으며, 이러한 변화가 SPAD 변동과 관련되었을 것으로 판단된다(Wardlaw 1990). 개화가 시작되는 120 DAT에서 대조구의 SPAD는 1.2배 급격히 상승하여 다른 처리구와 유사한 수준으로 증가하였다. 이는 생육 단계의 변화에 따라 엽록소 함량이 변화한 결과로 판단되며(Ota 1988), 개화와의 직접적인 인과관계는 추가적인 생리 분석이 필요하다.
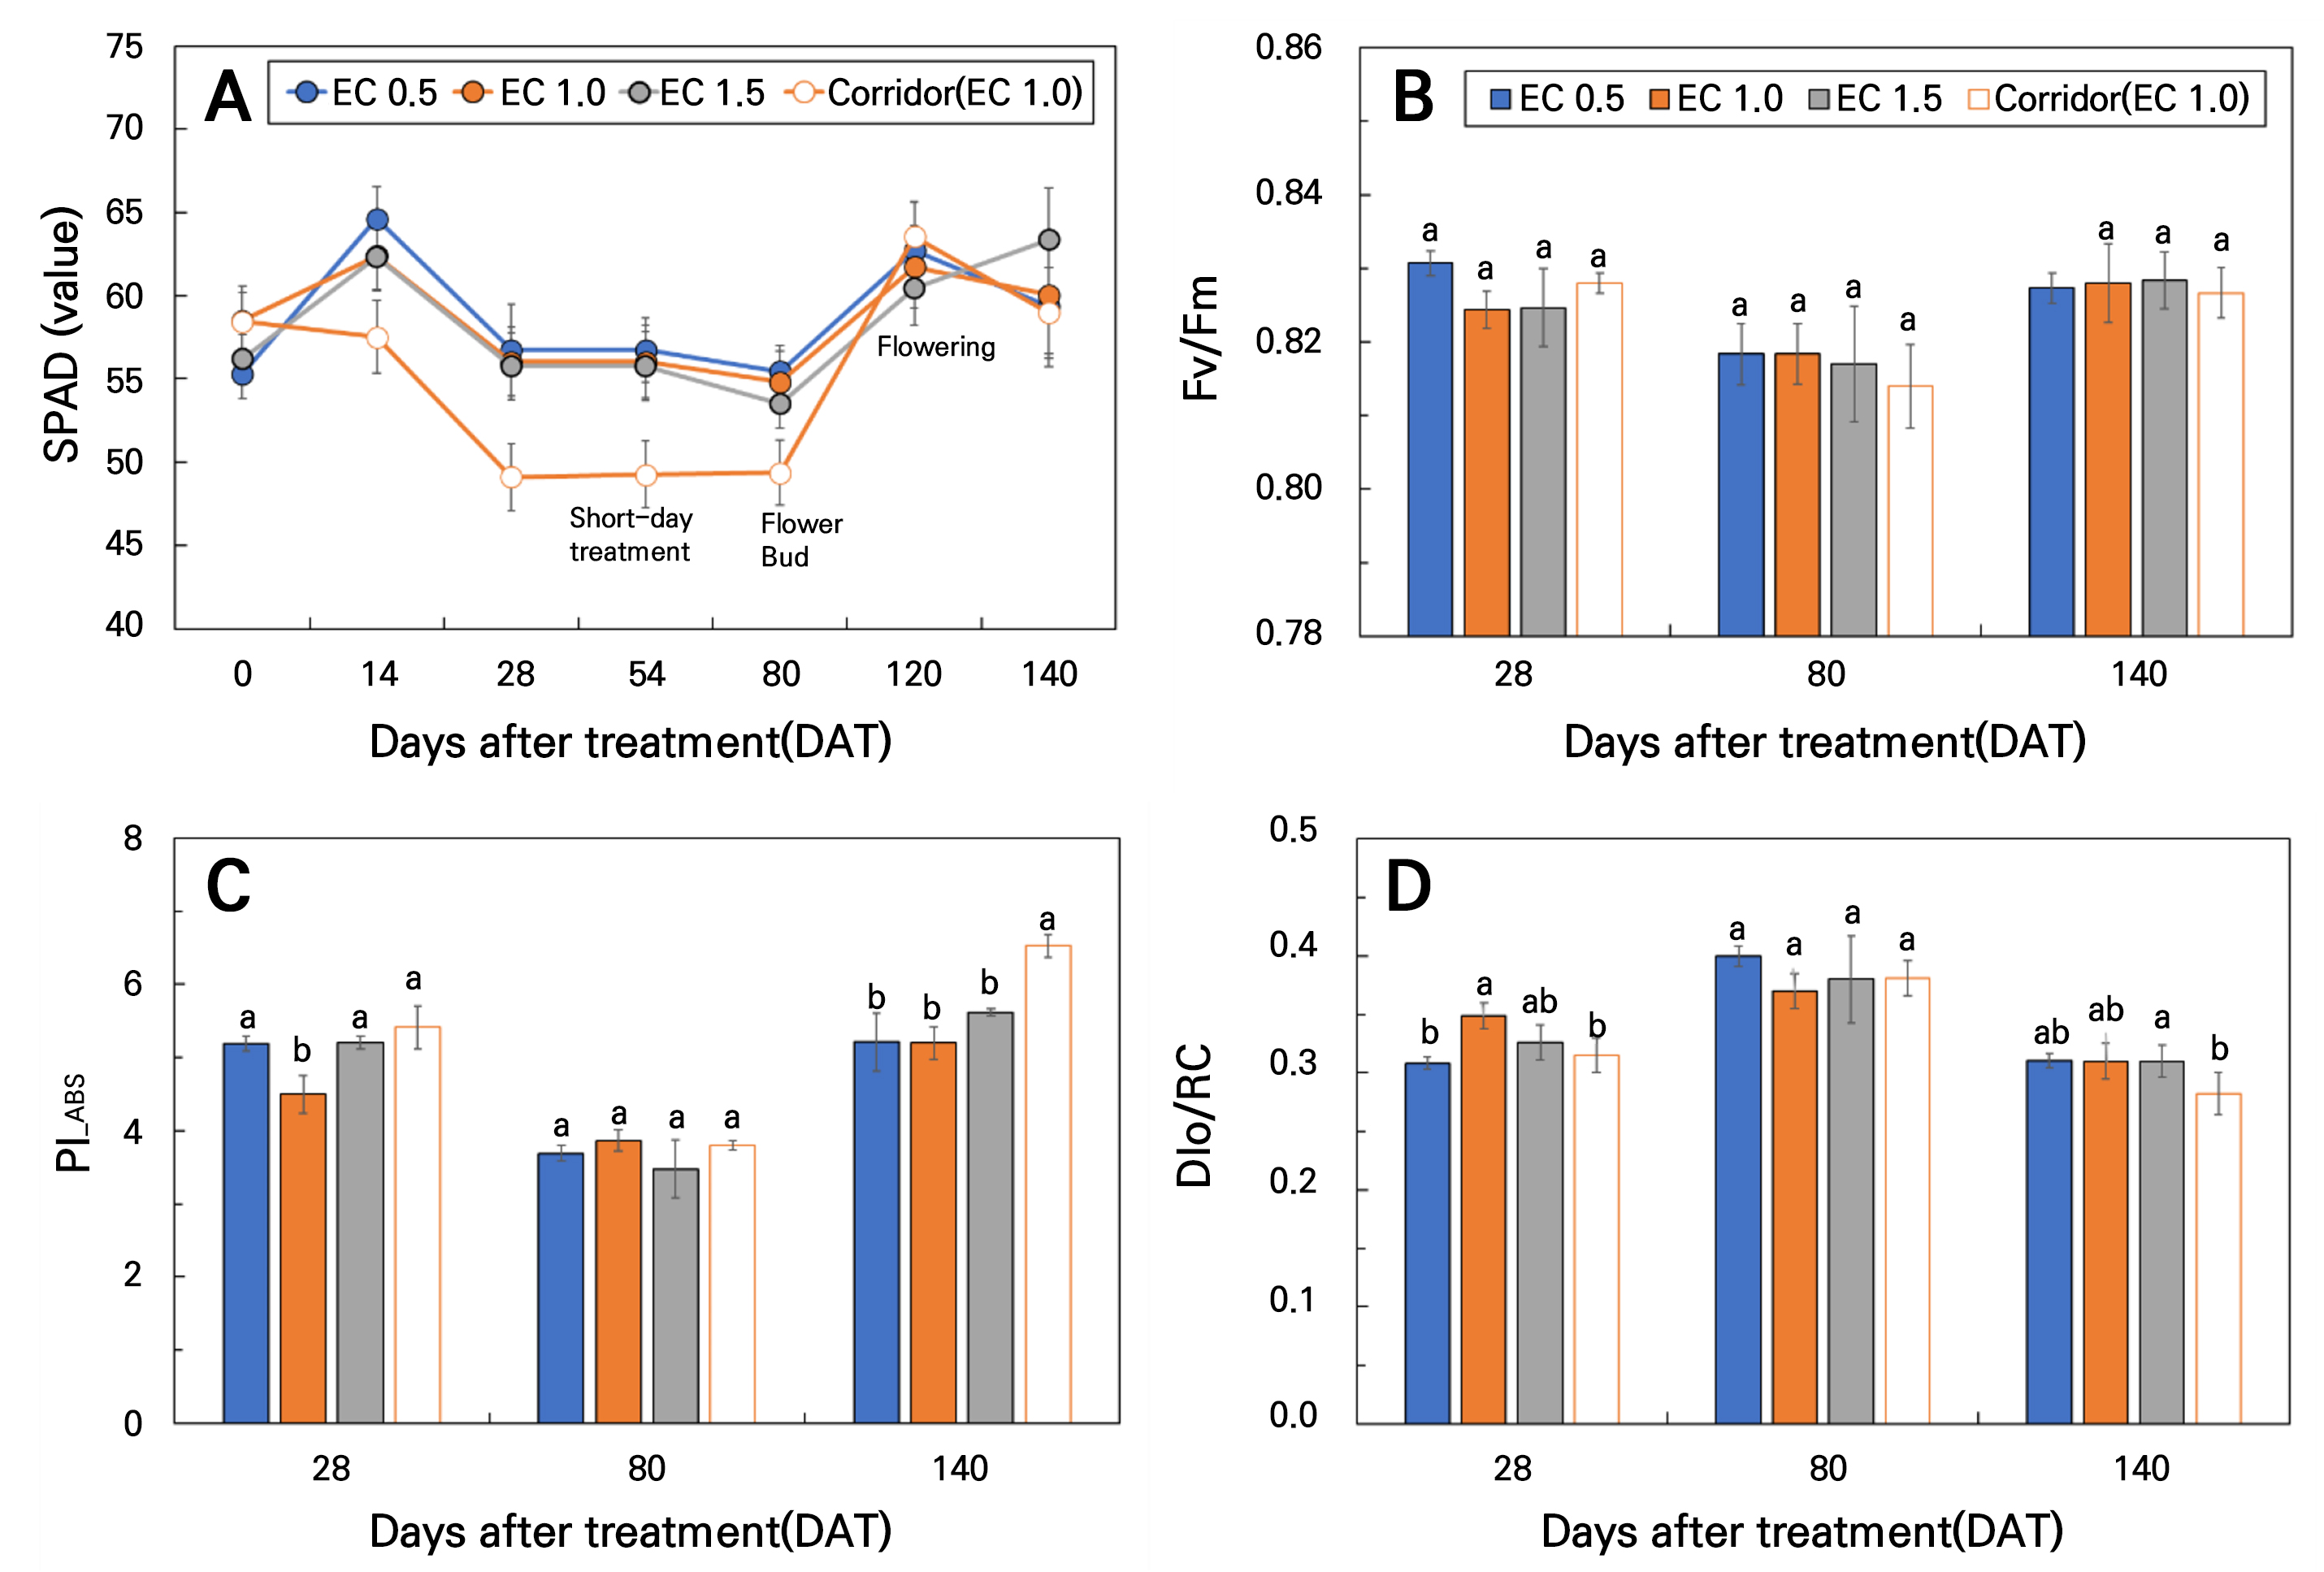
Fig. 3.
Changes of SPAD at 0, 14, 28, 54, 80, 120, and 140 days after treatment (A, n=12) and selected parameters to quantify the PSII performance at 28, 80, and 140 days after treatment (B–D, n=3) in Kalanchoe blossfeldiana under different EC levels and vapor pressure deficits (VPD) in an aquaponic system. Vertical bars indicate the standard deviation (SD). Different letters within the same DAT indicate significant differences among the EC treatments according to Duncan’s multiple range test at p < 0.05; DAT 54, Start of short–day treatment (4weeks); DAT 80, Flower Bud formation; DAT 120–140, Flowering.
28, 80, 140 DAT 엽록소 형광 변수(Fv/Fm, PI_ABS, DIo/RC)를 통한 PSII의 광화학적 효율을 분석한 결과(Fig. 3B–3D), Fv/Fm은 모든 처리구에서 실험 전 기간 동안 0.81–0.83 범위로 유지하였다(Fig. 3B). Fv/Fm은 PSII의 잠재적 최대 광화학 효율을 나타내는 지표로(Oquist et al. 1992), 0.79–0.84 범위에서는 스트레스로 인한 PSII 기능의 저하가 발생되지 않는다고 보고하였다(Maxwell and Johnson 2000). 본 실험에서는 EC 수준 및 재배 환경에 따른 광계의 손상이나 광저해가 발생하지 않은 것으로 나타났다. 이는 대조구의 높은 VPD 조건에서도 지속적인 수분 공급이 광합성 장치의 구조적 손상을 방지하였음을 시사한다.
PSII의 성능 지수인 PI_ABS(performance index on absorption basis)를 살펴본 결과, 재배 환경에 따른 차이를 보였다(Fig. 3C). PI_ABS는 반응중심흡수(ABS), 광합성효율(TRo)과 전자전달효율(ETo)을 포괄하여 광합성의 능력을 평가할 수 있는 지표로(Stirbet et al. 2018) 이 지수가 높을수록 전자전달 및 에너지 전환 효율이 높은 상태로 유지되었음을 나타낸다(Zuo et al. 2025). 모든 처리구에서 80 DAT에 PI_ABS가 일시적으로 감소하였는데, 이는 생식생장 전환기 동안 동화산물이 생식 기관으로 우선 배분됨에 따라 광화학 반응이 일시적으로 하향 조절된 결과로 해석된다. 반면, 140 DAT는 모든 처리구에서 PI_ABS가 증가하였으며, 대조구에서 6.5로 현저히 높아 빛 에너지를 화학 에너지로 전환하는 전자전달 효율이 높게 유지되었음을 시사하였다. 반응중심당 에너지 소산 비율을 나타내는 DIo/RC는 비광화학적 에너지 소산 또는 광보호 기작이 활성화될 때 증가하는 것으로 알려져 있다(Singh et al. 2022). 본 실험에서 DIo/RC는 모든 처리구에서 28 DAT 보다 80 DAT에 증가하였고, 이후 140 DAT에 감소하는 경향을 보였다(Fig. 3D). SPAD 및 PI_ABS와의 동시적인 변화는 엽록소 함량의 증가가 실제 광화학 반응 중심의 활성도 향상으로 이어졌음을 시사한다(Zuo et al. 2025). 특히 대조구는 낮은 상대습도 조건에도 불구하고 생육 후기(140 DAT)에서 PI_ABS가 가장 높고 DIo/RC는 낮게 나타나 광계II의 광화학적 효율이 안정적으로 유지되었음을 보여준다. 본 실험에서 EC 범위(0.5–1.5dS·m-1)는 칼랑코에의 광합성 장치에 스트레스를 유발하는 임계 수준에 도달하지 않았으며, 아쿠아포닉스 조건에서의 안정적인 수분·양분 공급이 VPD 변동에 의한 환경 스트레스를 완충한 것으로 판단된다.
생육특성
실험 종료 시점인 140 DAT에서 초장, 초폭, 엽 경도, 줄기 굵기, 첫 번째 화경의 화고 및 화폭에서 처리 간 차이가 나타났다(Table 2). 초장은 모든 처리에서 50cm 이상으로 유의적 차이가 없었다. 반면 초폭은 대조구에서 31.0cm로 가장 넓었으며, EC 1.0처리구의 26.6cm와 EC 1.5 처리구 27.3cm에서 유의적으로 좁았다. 이는 상대습도가 낮은 대조구에서 장기적으로 엽의 수평적 면적을 확장시키면서 광 포획 면적을 넓혀 건조환경에 대한 적응 반응일 가능성이 있다(Grossiord et al. 2020). 이는 높은 Pn(Fig. 2A) 및 Cond(Fig. 2B) 유지와 함께 일관된 결과로 보인다. 엽 경도는 대조구(12.0N)와 EC 1.5 처리구(10.8N)에서 높게 나타났으며, EC 0.5처리구와 EC 1.0처리구에서는 8.7N 이하로 낮았다. 엽 경도는 조직 밀도와 세포벽 강화 정도를 반영하는 지표로 알려져 있으며, 이는 건조 환경 또는 상대적으로 높은 EC 조건에서 구조적 적응이 이루어졌을 가능성을 시사한다. 특히 대조구에서 개화기 이후 SPAD(Fig. 3A) 및 PI_ABS(Fig. 3C)가 증가하고 DIo/RC(Fig. 3D)가 감소한 점은 광합성 장치의 효율이 안정적으로 유지된 환경에서 조직 발달이 촉진되었을 가능성을 보여준다(Clemente-Moreno et al. 2025). 줄기 굵기는 EC 처리구에서 8mm 이상으로 상당히 굵었고, 대조구에서는 7.57mm로 상대적으로 얇았다. 줄기는 광합성 산물을 각 기관으로 분배하는 통도 기관으로(Wardlaw 1990), 생식 생장 또는 엽 확장에 동화산물이 우선 배분될 경우 줄기 비대가 제한될 수 있다(Poorter et al. 2012). 본 실험에서 대조구의 얇은 줄기는 생식 기관 및 엽 발달에 상대적으로 많은 자원이 배분된 결과로 판단된다(Marcelis 1996). 직접적인 당·전분 분석 데이터는 측정되지 않았으나, Pn(Fig. 2A) 및 SPAD(Fig. 3A), PI_ABS(Fig. 3C)와 같은 광합성 기능 지표가 대조구에서 일관되게 높은 수준을 유지한 점은 대조구 내 source 강도가 상대적으로 높았음을 간접적으로 시사한다(Smith and Stitt 2007; Males 2017). 첫 번째 화경의 화고는 EC 1.5에서 10.5cm로 다른 처리구보다 2.2–3.3cm 낮았으며, 화폭은 대조구에서 7.4cm로 9cm 이상인 다른 처리구 보다 좁았다. 이는 자원 배분 원리에 따라 생식 기관 내에서 구조적 지지(화고)와 시각적 유인 기능(화폭) 간 자원 배분의 차이가 나타난 결과로 해석된다(Bazzaz et al. 1987).
Table 2.
Effects of EC levels and vapor pressure deficits (VPD) on the growth characteristics and floral traits of the first pedunclez of Kalanchoe blossfeldiana grown in an aquaponic system at 140 days after treatment
| Treatmenty |
EC (dS·m-1) | Plant (cm) |
Leaf hardness (N, Ø 3 mm probe) |
Stem dia. (mm) | 1st Peduncle (cm) | ||
| Height | Width | Height | Width | ||||
| Growth room | 0.5 | 51.9 abx | 28.0 ab | 8.7 b | 8.15 a | 13.8 a | 9.0 a |
| 1.0 | 52.1 ab | 26.6 b | 8.5 b | 8.49 a | 12.8 ab | 8.9 a | |
| 1.5 | 50.2 b | 27.3 b | 10.8 a | 8.58 a | 10.5 b | 9.5 a | |
| Corridor | 1.0 | 52.9 a | 31.0 a | 12.0 a | 7.57 b | 13.4 a | 7.4 b |
| Significantw | ns | * | * | * | * | *** | |
zFloral traits (peduncle height and width) were measured on the first peduncle of each plant, as individual plants produced multiple peduncles of varying developmental stages.
개화특성
본 실험에서 EC 수준에 따른 140 DAT 개화 반응은 소화수, 미개화수, 개화율에서 뚜렷한 차이를 보였다(Table 3). 평균 화경수는 대조구(12.2개)에서 가장 많았으며, EC 0.5(11.3개)와 EC 1.5(9.7개), EC 1.0(9.0개) 순으로 감소하였다. 그러나 소화수는 EC 0.5 처리구에서 105.0개로 가장 많았고, 대조구에서는 42.8개로 가장 적었다. 미개화수 역시 EC 0.5처리구에서 75.6개로 가장 많고, 대조구에서 15.3개로 가장 적었다. 누적 개화수는 처리 간 유의적 차이가 없었으나(25.6–29.5개), 개화율은 대조구에서 64.6%로 재배실 EC 처리구(27.9–33.2%)보다 2배 이상 높게 나타났다. 소화수와 개화율 간의 역의 관계는 동화산물의 분배 구조 변화와 관련될 가능성이 있으며, 이러한 해석은 source–sink 관계를 설명한 선행 연구와 일치한다. 재배실에서는 다수의 소화가 형성되었으나, 싱크(sink) 수 증가에 따른 개별 sink로의 동화산물 공급 감소가 개화 전환을 제한하는 sink 경쟁이 발생했을 가능성이 높다(Wardlaw 1990; Marcelis 1996). 본 실험에서 직접적인 당·전분 함량은 측정되지 않았으나, Pn(Fig. 2A), SPAD(Fig. 3A), PI_ABS(Fig. 3C)가 대조구에서 일관되게 높게 유지된 점은 source 강도의 처리 간 차이를 간접적으로 시사한다(Smith and Stitt 2007). 식물체 내 가용 탄수화물의 절대량보다 source 강도와 sink 수의 비율(source-to-sink ratio)이 개화 전환의 핵심 결정 요인임은 선행 연구에서 보고된 바 있다(Wardlaw 1990; Marcelis 1996; Ruan et al. 2012). 또한 탄수화물 가용성은 florigen(FT 단백질)의 체관부 이동과 생식 기관의 발달을 조절하는 당 신호(sugar signaling) 경로를 통해 개화를 직접 제어하는 것으로 알려져 있으며(Corbesier et al. 1998; Gibson 2005), 이는 본 실험에서 재배실의 낮은 개화율이 단순한 화아 유도 지연이 아닌 개화 전환 단계에서의 자원 제한에 의한 것임을 뒷받침한다. 반면 대조구에서는 높은 VPD 조건에서도 상대적으로 높은 Pn과 Cond가 관찰되었으며, 이는 아쿠아포닉스의 지속적인 수분 공급과 VPD를 포함한 재배 환경 차이가 함께 작용한 결과일 가능성이 있다. 대조구의 높은 개화율이 VPD 상승에 따른 단순한 성숙 가속에 의한 것이 아님은 처리 간 누적 개화수에서 유의적 차이가 없었다는(25.6–29.5개) 것이 뒷받침한다. CAM 식물에서 VPD는 야간 기공 개방 정도를 통해 CO2 흡수량과 source 강도를 결정하며(Males and Griffiths 2017), 이렇게 형성된 탄소 공급 상태는 식물체 내 당 신호(sugar signaling)를 통해 개화 유도 및 생식 기관 발달과 직접적으로 연계된다(Smith and Stitt 2007). 본 실험에서 관찰된 소화수와 개화율 간의 상호보완적 trade-off는 이러한 VPD 변동과 연동된 탄소 동화 변화와 자원 재분배(resource reallocation) 기작이 광합성 효율(Fig. 2) 및 PSII 성능(Fig. 3)과 함께 개화 반응을 결정한 결과로 이해된다(Hasna et al. 2024). 특히, CAM 식물에서 개화 자원 배분은 C3·C4 식물보다 야간 탄소 동화량의 변동에 더 민감하게 연동될 수 있으며(Males and Griffiths 2017), 이는 VPD 조건에 따른 야간 CO2 흡수 차이가 본 실험의 개화율 차이를 증폭시켰을 가능성을 추가적으로 시사한다. 그러나 이러한 기작을 명확히 규명하기 위해서는 당·전분 함량 및 탄수화물 분배에 대한 추가적인 분석이 필요할 것으로 판단된다.
Table 3.
Effects of EC levels and vapor pressure deficits (VPD) on the flowering characteristics of Kalanchoe blossfeldiana in an aquaponic system at 140 days after treatment
| Treatmentz |
EC (dS·m-1) |
No. of peduncles (ea·plant-1) | No. of florets | No. of unopened flowers | Cumulative No. of bloomsy |
Cumulative
flowering ratew (%) |
| --------------------- (ea·peduncle-1)x --------------------- | ||||||
| Growth room | 0.5 | 11.3 abv | 105.0 a | 75.6 a | 29.4 a | 27.9 b |
| 1.0 | 9.0 b | 74.1 b | 48.1 b | 25.6 a | 33.2 b | |
| 1.5 | 9.7 ab | 84.5 b | 54.9 b | 29.5 a | 31.8 b | |
| Corridor | 1.0 | 12.2 a | 42.8 c | 15.3 c | 26.4 a | 64.6 a |
| Significantu | ns | **** | **** | ns | **** | |
본 연구는 아쿠아포닉스 환경에서 칼랑코에의 생육 및 개화 반응이 EC 수준보다 VPD를 포함한 환경 요인에 의해 더 크게 나타나는 경향을 확인하였다. 대조구에서는 재배실과 다른 재배 환경(VPD 포함)에서 상대적으로 높은 광합성 활성이 유지되었으며, 이러한 차이는 형태적 적응과 개화율 증가와 함께 나타났다. 반면 재배실에서는 낮은 VPD 조건(평균 VPD 1.18kPa)에서 다수의 소화가 형성되었으나, sink 경쟁과 같은 동화산물 분배의 차이가 개화 전환 효율에 영향을 미쳤을 가능성이 있다. 이러한 소화수와 개화율 간의 trade-off는 재배 환경에 따른 광합성 활성 및 동화산물 분배의 차이와 관련되었을 가능성이 있으며, 이는 source–sink 관계를 설명한 선행 연구와 유사한 경향을 보였다. 이는 CAM 식물의 생리적 특성과 아쿠아포닉스의 안정적인 양·수분 공급 환경이 복합적으로 작용한 결과일 가능성이 있다. 따라서 아쿠아포닉스 시스템에서 CAM 식물의 생육과 개화 반응을 최적화하기 위해서는 EC와 같은 양분 요인뿐만 아니라 VPD를 포함한 재배 환경의 통합적 관리가 필요하며 향후 동화산물 분배에 대한 생리 분석이 추가적으로 수행될 필요가 있다.
